Aminosäuren: Aufbau, Konfiguration und Ladung
Wie α-Aminosäuren gebaut sind, welche davon proteinogen sind, warum fast alle L-konfiguriert sind und wie sich der isoelektrische Punkt aus den pKa-Werten ergibt.
Das Wichtigste in Kürze
- Eine α-Aminosäure trägt Amino- und Carboxygruppe am selben α-C, dazu H und eine Seitenkette R; proteinogene Aminosäuren werden in Proteine eingebaut.
- Die 20 kanonischen Aminosäuren werden über mRNA-Codons codiert; mit dem nicht kanonischen L-Selenocystein gibt es mehr als 20 proteinogene.
- Ornithin, β-Alanin, L-DOPA, Betain, Phenylglycin und Indolylglycin sind nicht proteinogen; oft fehlt nur eine \(\ce{CH2}\)-Gruppe oder es kommt eine OH-Gruppe hinzu.
- 19 der 20 kanonischen Aminosäuren sind chiral und L-konfiguriert; Glycin ist achiral, D-Aminosäuren werden nicht codiert.
- L-Cystein ist als einzige kanonische Aminosäure (R), weil Schwefel die Seitenkette über die Carboxygruppe hebt.
- Am isoelektrischen Punkt ist die Nettoladung null; bei neutralen Aminosäuren gilt \(\mathrm{pI} = (\mathrm{p}K_{\mathrm{a}1} + \mathrm{p}K_{\mathrm{a}2})/2\).
Worum es geht
Aminosäuren sind die Monomere der Proteine und damit Bausteine jedes Enzyms, Rezeptors und Peptidarzneistoffs. Wer ihren Bauplan, ihre Stereochemie und ihr Säure-Base-Verhalten versteht, kann Strukturformeln sicher einordnen. Das hilft später bei Elektrophorese und Proteinanalytik.
Aufbau der α-Aminosäuren
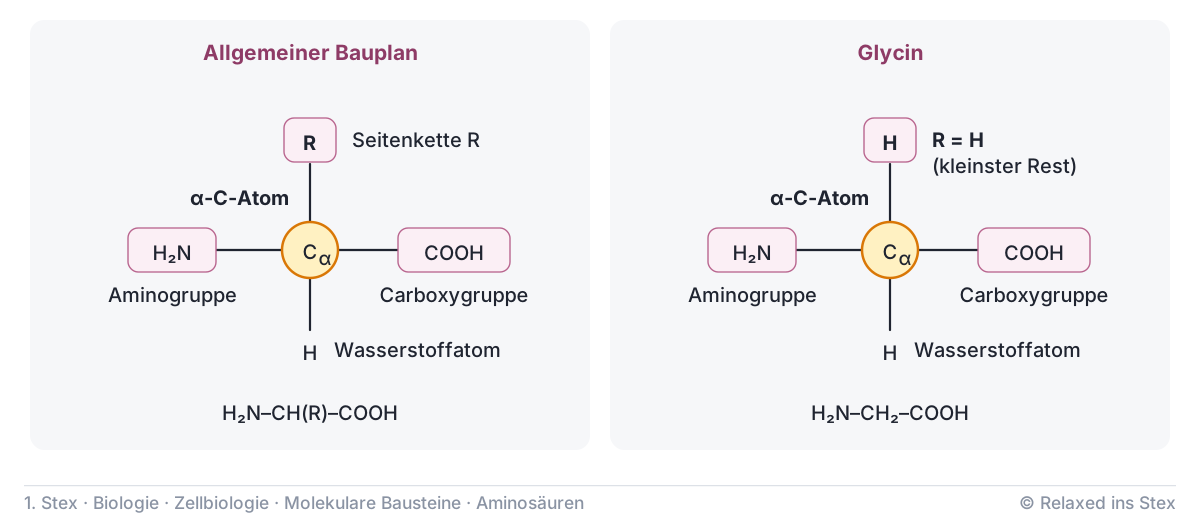
Eine α-Aminosäure trägt Aminogruppe und Carboxygruppe am selben Kohlenstoffatom, dem α-C. Die beiden übrigen Bindungen dieses Atoms gehen an ein H-Atom und an die Seitenkette R. Allgemein lautet die Formel \(\ce{H2N-CHR-COOH}\). Nur die Seitenkette unterscheidet die Aminosäuren voneinander.
Die einfachste ist Glycin mit R = H. Der Name erinnert an das griechische Wort für süß, doch Glycin ist eine Aminosäure und kein Kohlenhydrat.
Weil jede Aminosäure eine Aminogruppe besitzt, ist Stickstoff Baustein aller Aminosäuren und damit aller Proteine. In Pflanzen und Tieren liegt der organisch gebundene Stickstoff überwiegend reduziert vor, etwa als Aminogruppe mit der Oxidationszahl −3. Pflanzen nehmen zwar Nitrat auf, reduzieren es aber, bevor sie es einbauen.
Proteinogene Aminosäuren
In der Natur kommen Hunderte Aminosäuren vor. Nur ein kleiner Teil davon wird beim Aufbau von Proteinen am Ribosom eingebaut.
Proteinogen heißt eine Aminosäure, die bei der Translation in Proteine eingebaut wird. Kanonisch sind die 20 Standardaminosäuren, die der universelle genetische Code direkt über Basentripletts der mRNA verschlüsselt.
Zu den kanonischen zählen etwa Arginin, Cystein, Glycin, Histidin, Leucin, Methionin, Phenylalanin, Prolin, Threonin, Tryptophan, Tyrosin und Valin. Histidin und Tryptophan sind dabei keine Sekundärstoffe. Sie gehören als Proteinbausteine zum Primärstoffwechsel, auch wenn Pflanzen aus ihnen später Alkaloide bilden. Methionin eröffnet als Startaminosäure jede Proteinkette, das wird bei der Translation erklärt.
Es gibt mehr als 20 proteinogene Aminosäuren. L-Selenocystein ist proteinogen, aber nicht kanonisch. Die Zelle baut es über ein umcodiertes Stoppcodon (UGA) ein, wofür sie ein besonderes Signal in der mRNA braucht. Ähnlich verhält es sich mit Pyrrolysin in einigen Archaeen.
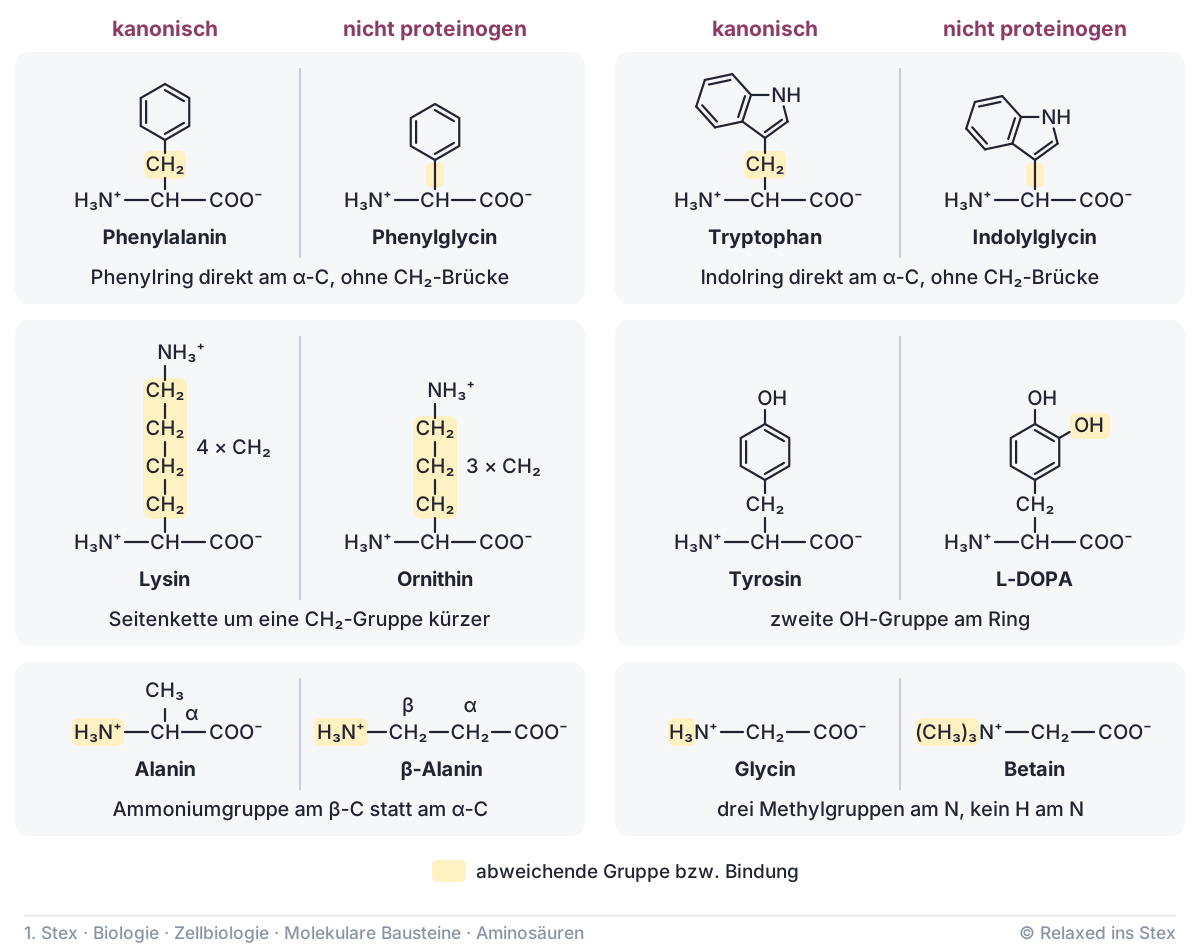
Viele Aminosäuren entstehen dagegen nur im Stoffwechsel und werden nie codiert. Ornithin ist Zwischenprodukt im Harnstoffzyklus. β-Alanin steckt in der Pantothensäure. L-DOPA ist Vorstufe des Dopamins und Arzneistoff gegen Parkinson. Betain ist N,N,N-Trimethylglycin. Phenylglycin und Indolylglycin sind synthetische Bausteine, die in Proteinen fehlen.
Die Einordnung an Zwitterionformeln wird im Examen gerne gefragt: Oft trennt nur eine \(\ce{CH2}\)-Gruppe, eine OH-Gruppe oder die Stellung der Aminogruppe proteinogen von nicht proteinogen. Die Tabelle zeigt die typischen Paare.
| Proteinogen | Nicht proteinogen | Unterschied |
|---|---|---|
| Phenylalanin | Phenylglycin | Phenylring direkt am α-C, \(\ce{CH2}\) fehlt |
| Tryptophan | Indolylglycin | Indolring direkt am α-C, \(\ce{CH2}\) fehlt |
| Lysin | Ornithin | Seitenkette eine \(\ce{CH2}\)-Gruppe kürzer |
| Tyrosin | L-DOPA | zusätzliche OH-Gruppe am Ring |
| Alanin | β-Alanin | Aminogruppe am β-C statt am α-C |
| Glycin | Betain | Stickstoff dreifach methyliert |
So prüfst du eine vorgelegte Formel:
- α-Stellung: Sitzen \(\ce{NH3+}\) und \(\ce{COO-}\) am selben C-Atom? Wenn nicht, ist es keine kanonische α-Aminosäure.
- Stickstoff: Trägt er drei H-Atome (bei Prolin zwei, da Teil eines Rings)? Drei Methylgruppen wie bei Betain schließen sie aus.
- Seitenkette: Zähle die \(\ce{CH2}\)-Gruppen bis zum Ring oder zur funktionellen Gruppe und vergleiche mit der bekannten Seitenkette.
- Zusatzgruppen: Eine zusätzliche OH-Gruppe wie bei L-DOPA zeigt ein Stoffwechselprodukt an.
Die einzelnen Seitenketten lernst du bei den unpolaren und aromatischen sowie den polaren, sauren und basischen Aminosäuren kennen.
Chiralität und L-Konfiguration
Das α-C trägt bei fast allen Aminosäuren vier verschiedene Substituenten. Es ist damit ein asymmetrisches C-Atom, und das Molekül ist chiral. Von den 20 kanonischen Aminosäuren sind 19 chiral. Glycin ist die Ausnahme: Es trägt zwei H-Atome am α-C, ist achiral und hat keine Stereoisomere.
Die Konfiguration benennt man nach der Fischer-Projektion, wie bei den Zuckern. Alle 19 chiralen kanonischen Aminosäuren sind L-konfiguriert. Ribosomal gebildete Proteine enthalten daher außer Glycin nur L-Aminosäuren. Codons verschlüsseln keine D-Formen. D-Arginin, D-Methionin, D-Valin oder D-Isoleucin sind deshalb nicht proteinogen.
Aminosäuren insgesamt sind trotzdem nicht immer L-konfiguriert. D-Alanin und D-Glutaminsäure stecken etwa im Murein der Bakterienzellwand. Sie entstehen enzymatisch außerhalb des Ribosoms.
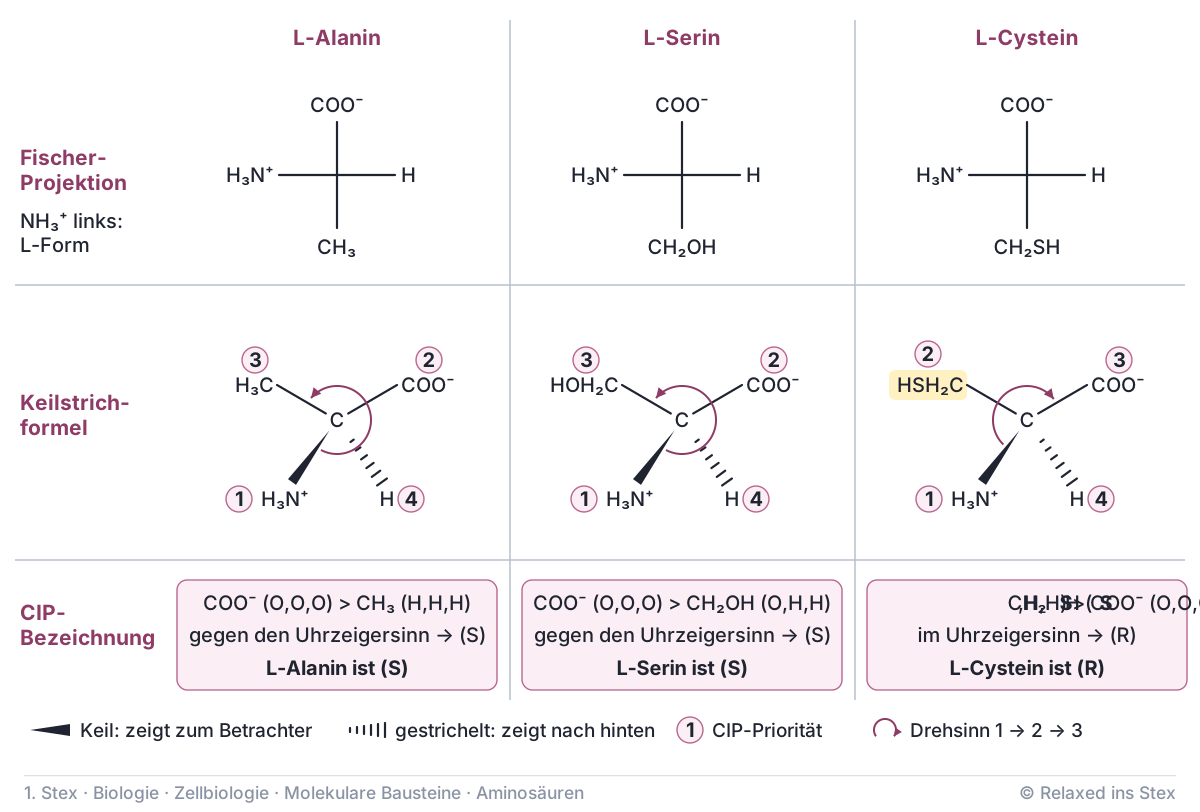
L-Aminosäure in der Fischer-Projektion: \(\ce{COO-}\) oben, Seitenkette unten, \(\ce{NH3+}\) zeigt nach links.
Die D/L-Angabe beschreibt die räumliche Lage. Die R/S-Bezeichnung nach CIP richtet sich dagegen nach den Prioritäten der Substituenten. Bei den meisten L-Aminosäuren gilt \(\ce{NH3+}\) > \(\ce{COO-}\) > R > H, was (S) ergibt. Bei Cystein trägt die Seitenkette ein Schwefelatom. Schwefel hat eine höhere Ordnungszahl als Sauerstoff, also schlägt \(\ce{CH2SH}\) die Carboxygruppe. Die Ränge 2 und 3 tauschen, und L-Cystein wird (R), obwohl es räumlich genauso gebaut ist wie L-Serin.
An einer Keilstrichformel bestimmst du die Konfiguration so:
- Prioritäten: Ordne die vier Substituenten am α-C nach CIP, meist \(\ce{NH3+}\) (1), \(\ce{COO-}\) (2), R (3), H (4).
- Blickrichtung: Schau so auf das Molekül, dass H nach hinten zeigt. Steht H auf einem Keil nach vorn, kehrst du das Ergebnis am Ende um.
- Drehsinn: Folgt 1 → 2 → 3 dem Uhrzeigersinn, ist das Zentrum (R), sonst (S).
- Zuordnen: Vergleiche die Seitenkette mit den kanonischen. (S) bei Nicht-Cystein oder (R) bei Cystein bedeutet L.
L-Cystein ist als einzige der 20 kanonischen Aminosäuren am α-C (R)-konfiguriert, die übrigen chiralen sind (S). Achte darauf, L nicht mit S gleichzusetzen: Ursache ist allein die höhere Priorität der schwefelhaltigen Seitenkette.
Zwitterion und isoelektrischer Punkt
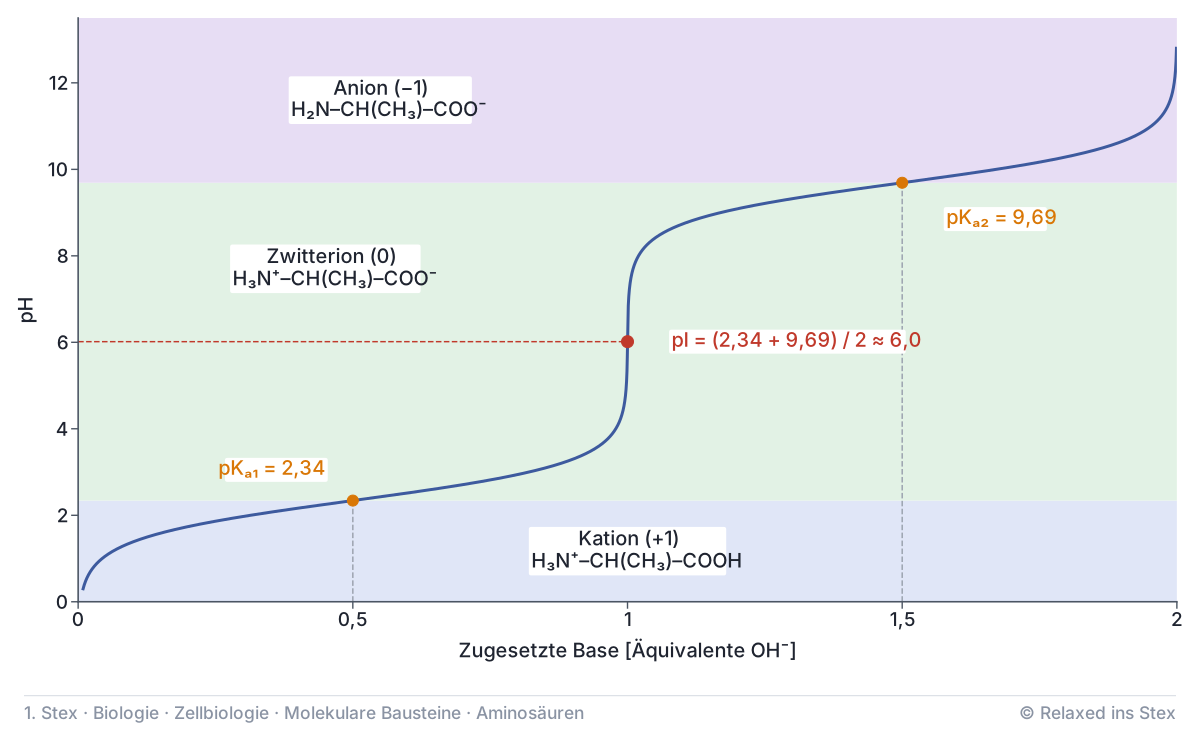
Aminosäuren sind zugleich Säure und Base. In neutraler Lösung gibt die Carboxygruppe ein Proton ab, und die Aminogruppe nimmt eines auf. So entsteht ein Zwitterion: ein Molekül mit positiver und negativer Ladung, das insgesamt neutral ist. In stark saurer Lösung liegt das Kation vor, in stark basischer das Anion. Die beiden Protolysestufen lauten:
\[\ce{H3N^+-CHR-COOH <=> H3N^+-CHR-COO^- + H+}\quad (\mathrm{p}K_{\mathrm{a}1})\]
\[\ce{H3N^+-CHR-COO^- <=> H2N-CHR-COO^- + H+}\quad (\mathrm{p}K_{\mathrm{a}2})\]
Der isoelektrische Punkt (pI) ist der pH-Wert, bei dem die Nettoladung null ist. Bei einem Protein heißt das: Positiv und negativ geladene Gruppen sind gleich zahlreich. Der pI ist also ein pH-Wert und eine Stoffeigenschaft. Er hat nichts mit der angelegten Spannung oder der Wanderungsgeschwindigkeit in einer Elektrophorese zu tun. Am pI wandert ein Molekül im elektrischen Feld schlicht nicht.
Bei einer neutralen Aminosäure wie Alanin oder Valin liegt das Zwitterion genau zwischen den beiden Protolysestufen. Daraus folgt:
\[\mathrm{pI} = \frac{\mathrm{p}K_{\mathrm{a}1} + \mathrm{p}K_{\mathrm{a}2}}{2}\]
\(\mathrm{p}K_{\mathrm{a}1}\) gehört zur Carboxygruppe, \(\mathrm{p}K_{\mathrm{a}2}\) zur Aminogruppe. Die Formel gilt für Aminosäuren ohne ionisierbare Seitenkette.
Beispiel: Alanin hat die pKa-Werte 2,3 und 9,7. Der pI beträgt \((2{,}3 + 9{,}7)/2 = 6{,}0\). Die Titrationskurve zeigt dort einen Wendepunkt, an dem fast nur Zwitterion vorliegt.
Auch ganze Proteine haben einen charakteristischen pI, der von ihrer Zusammensetzung abhängt. Deshalb lassen sich Enzyme über ihren isoelektrischen Punkt charakterisieren und etwa durch isoelektrische Fokussierung trennen.
Quiz
Aussage 1
Glycin kommt als D- und als L-Enantiomer vor.
Glycin trägt zwei H-Atome am α-C, besitzt kein asymmetrisches C-Atom und ist achiral. Es hat keine Stereoisomere.
Aussage 2
Ribosomen bauen neben L-Valin auch D-Valin in Proteine ein, wenn das passende Codon vorliegt.
Codons verschlüsseln nur L-Aminosäuren. D-Aminosäuren wie D-Alanin im Murein entstehen enzymatisch außerhalb des Ribosoms.
Aussage 3
L-Selenocystein ist eine proteinogene, aber nicht kanonische Aminosäure.
Es wird in Proteine eingebaut, gehört aber nicht zu den 20 Standardaminosäuren, sondern nutzt ein umcodiertes UGA-Codon.
Aussage 4
Ornithin wird über ein eigenes mRNA-Codon in Proteine eingebaut.
Ornithin ist nicht proteinogen. Es entsteht im Harnstoffzyklus und besitzt kein Codon; seine Seitenkette ist eine \(\ce{CH2}\)-Gruppe kürzer als die von Lysin.
Aussage 5
Der isoelektrische Punkt von Valin entspricht dem arithmetischen Mittel der pKa-Werte von Carboxy- und Aminogruppe.
Valin hat keine ionisierbare Seitenkette. Das Zwitterion liegt genau zwischen beiden Protolysestufen, also gilt \(\mathrm{pI} = (\mathrm{p}K_{\mathrm{a}1} + \mathrm{p}K_{\mathrm{a}2})/2\).
Aussage 6
Phenylglycin ist nicht proteinogen, weil ihm im Vergleich zu Phenylalanin die \(\ce{CH2}\)-Gruppe zwischen α-C und Phenylring fehlt.
Bei Phenylglycin sitzt der Phenylring direkt am α-C. Diese Aminosäure wird nicht codiert.
Aussage 7
L-Cystein ist am α-C-Atom (R)-konfiguriert.
Die Seitenkette \(\ce{CH2SH}\) hat wegen des Schwefels eine höhere CIP-Priorität als \(\ce{COO-}\). Dadurch wird L-Cystein (R), die übrigen chiralen kanonischen Aminosäuren sind (S).
Fehler entdeckt oder eine Idee? Wir verbessern die Inhalte laufend. Melde es uns gerne über dieses Formular ❤️
Teile der Inhalte wurden mithilfe von KI-Systemen erstellt und werden fortlaufend redaktionell geprüft. Trotz Sorgfalt können Fehler enthalten sein. Wichtige Informationen bitte anhand offizieller Quellen prüfen. Relaxed ins Stex ist ein unabhängiges Angebot und steht in keiner Kooperation mit dem IMPP. Das Angebot ist weder vom IMPP autorisiert noch mit diesem verbunden.