Reaktionszyklus der Fettsäuresynthase
Die vier Teilreaktionen einer Verlängerungsrunde an der Fettsäuresynthase, ihre Zwischenstufen bis Butanoyl-ACP, der Bedarf an NADPH und die Grenzen des Enzyms.
Das Wichtigste in Kürze
- Der Reaktionszyklus der Fettsäuresynthase verlängert eine Acylkette pro Runde um zwei C-Atome durch Kondensation, Reduktion, Dehydratisierung und Reduktion.
- Die Ketoacyl-Reduktase reduziert die Oxogruppe am C-3 (β-C) zum 3-Hydroxyacyl-ACP, die Dehydratase bildet daraus ausschließlich trans-(E)-2-Enoyl-ACP.
- Pro Runde werden zwei \(\ce{NADPH + H+}\) verbraucht, nicht NADH; FAD ist nicht direkt beteiligt, Biotin wirkt in der Acetyl-CoA-Carboxylase.
- C4-Stufe: Malonyl-CoA → Acetoacetyl-ACP → 3-Hydroxybutanoyl-ACP → Crotonyl-ACP → Butanoyl-ACP; ungeradzahlige Stufen wie Propanoyl-ACP treten nicht auf.
- Nach der Enoyl-Reduktion wandert der Acylrest vom ACP auf die Cystein-SH des kondensierenden Enzyms; nach sieben Runden entsteht Palmitat.
- Die Synthase bildet nur gesättigte Fettsäuren; Desaturasen führen Doppelbindungen ein, Elongasen verlängern über C16 hinaus.
Worum es geht
Die Fettsäuresynthase verlängert eine Acylkette in wiederholten Runden um je zwei C-Atome. Jede Runde besteht aus derselben Folge von Kondensation, Reduktion, Dehydratisierung und Reduktion. Wer diese Folge sicher kennt, ordnet jede Zwischenstufe an ihrer Strukturformel zu und versteht, wo Hemmstoffe wie Isoniazid angreifen.
Reduktion der Oxogruppe
Jede Runde beginnt mit der decarboxylierenden Kondensation. Dabei verknüpft das kondensierende Enzym einen Acylrest mit Malonyl-ACP, und \(\ce{CO2}\) entweicht. Es entsteht ein 3-Oxoacyl-S-Enzym, auch 3-Ketoacyl-ACP genannt. In der ersten Runde ist das Acetoacetyl-ACP.
Gezählt wird vom Thioester aus. C-1 ist das Carbonyl-C, das über den Schwefel an das ACP gebunden ist. C-2 heißt α-C, C-3 heißt β-C. Die Ketogruppe sitzt am C-3. Genau dort setzt die 3-Ketoacyl-Reduktase an und reduziert die Ketogruppe mit \(\ce{NADPH + H+}\) zur Hydroxygruppe:
\[\ce{CH3-CO-CH2-CO-S-ACP + NADPH + H+ -> CH3-CH(OH)-CH2-CO-S-ACP + NADP+}\]
Produkt ist das 3-Hydroxyacyl-S-Enzym, in Runde eins 3-Hydroxybutanoyl-ACP. Das neue Stereozentrum am C-3 ist D-konfiguriert. Der Thioester an C-1 bleibt unverändert.
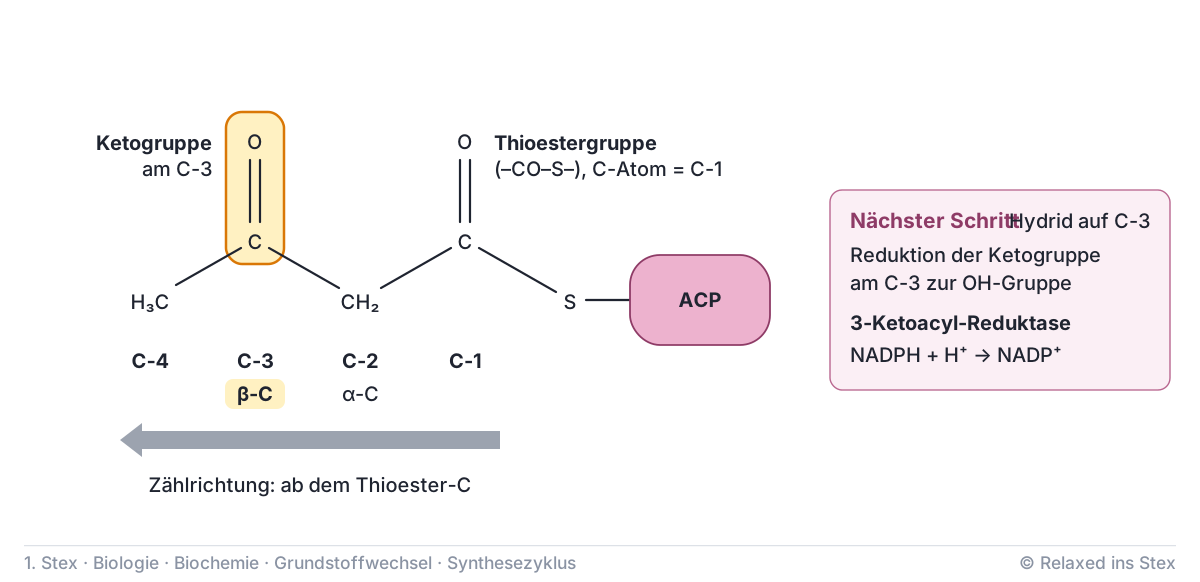
So bestimmst du an einer Strukturformel den Ort des nächsten Schritts:
- C-1 suchen: das Carbonyl-C, das direkt am S der Thioestergruppe hängt.
- Weiterzählen: das Nachbaratom ist C-2 (α), das folgende C-3 (β).
- Gruppe an C-3 prüfen: Eine Oxogruppe dort bedeutet, dass als Nächstes die Reduktion an genau diesem C-Atom folgt.
Dehydratisierung
Im zweiten Schritt spaltet die 3-Hydroxyacyl-Dehydratase Wasser ab. Die OH-Gruppe verlässt das C-3, ein Wasserstoff das C-2. Zwischen C-2 und C-3 entsteht so eine C=C-Doppelbindung.
\[\ce{CH3-CH(OH)-CH2-CO-S-ACP -> CH3-CH=CH-CO-S-ACP + H2O}\]
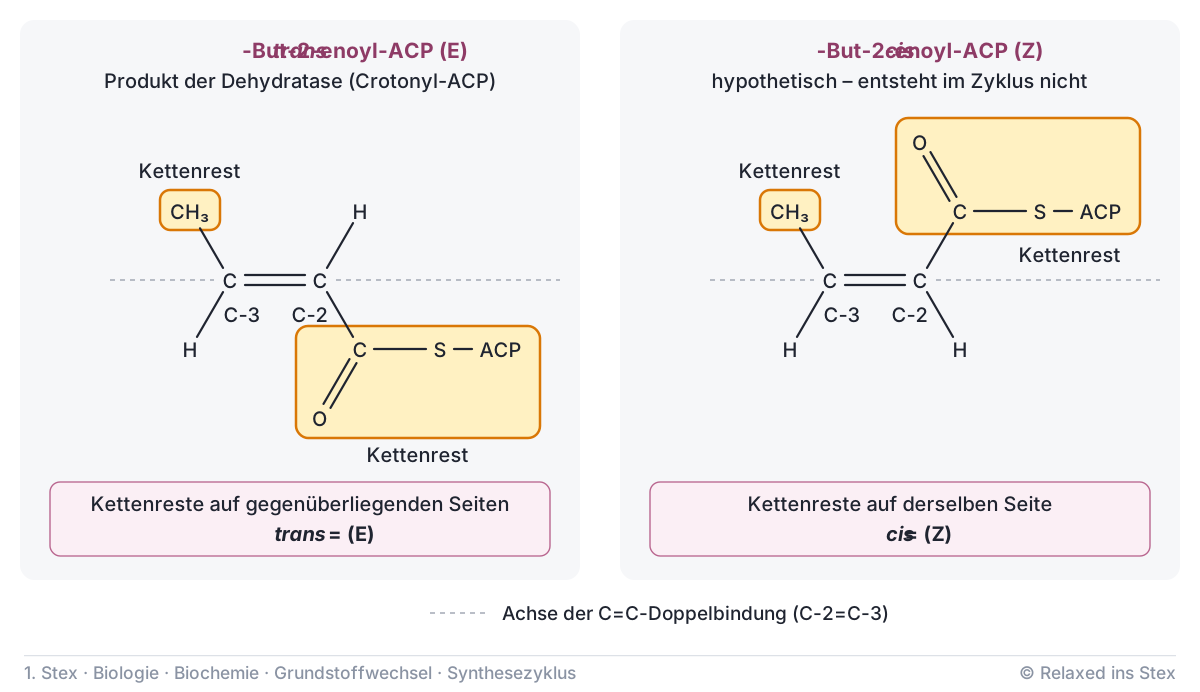
Die Dehydratase arbeitet stereospezifisch. Sie liefert ausschließlich das trans-(E)-2-Enoyl-S-Enzym. Die beiden Kettenreste stehen also auf entgegengesetzten Seiten der Doppelbindung. Ein cis-Enoyl-Derivat tritt im Synthesezyklus nicht auf. Wie man cis/trans und E/Z bestimmt, steht bei den Fettsäuren und Triacylglycerolen.
Enoyl-Reduktion
Die Enoyl-ACP-Reduktase schließt die Runde chemisch ab. Sie gehört zur Fettsäurebiosynthese und hydriert die trans-Doppelbindung zwischen C-2 und C-3. Wieder liefert \(\ce{NADPH + H+}\) die beiden Wasserstoffatome.
\[\ce{CH3-CH=CH-CO-S-ACP + NADPH + H+ -> CH3-CH2-CH2-CO-S-ACP + NADP+}\]
Es entsteht ein gesättigtes Acyl-S-Enzym, in Runde eins Butanoyl-ACP. Die Kette ist jetzt um zwei C-Atome länger als der eingesetzte Acylrest. Die bakterielle Form dieses Enzyms ist ein Arzneistoffziel: Isoniazid hemmt die Enoyl-ACP-Reduktase der Mykobakterien und blockiert so den Aufbau der Mycolsäuren.
NADPH als Reduktionsmittel
Pro Runde laufen also zwei Reduktionsschritte. Jeder verbraucht ein \(\ce{NADPH + H+}\): einmal an der Ketogruppe, einmal an der Doppelbindung. \(\ce{NADPH + H+}\) ist damit das Wasserstoff übertragende Cosubstrat der Fettsäuresynthase. Es stammt vor allem aus dem Pentosephosphatweg.
Die Synthase der Säugetiere verwendet NADPH und nicht \(\ce{NADH + H+}\). Der Grund liegt in der Arbeitsteilung der Zelle. Das NADPH-System liegt im Cytosol überwiegend reduziert vor und versorgt reduktive Biosynthesen. Das NAD-System bleibt weitgehend oxidiert und nimmt Elektronen aus dem Abbau auf. FAD ist nicht direkt beteiligt, und auch Eisen dient der Synthase nicht als Cofaktor.
Die Fettsäurebiosynthese braucht Biotin und \(\ce{NADPH + H+}\). Biotin wirkt aber vorher in der Acetyl-CoA-Carboxylase bei der Bildung von Malonyl-CoA, nicht in den Teilreaktionen der Synthase.
Der Vergleich mit der β-Oxidation zeigt, wie Auf- und Abbau getrennt sind:
- Ort: Cytosol
- Träger: ACP
- Coenzym: zweimal \(\ce{NADPH + H+}\) verbraucht
- 3-Hydroxy-Zwischenstufe: D-konfiguriert
- Ort: Mitochondrienmatrix
- Träger: CoA
- Coenzyme: FAD und \(\ce{NAD+}\) werden reduziert
- 3-Hydroxy-Zwischenstufe: L-konfiguriert
Zwischenprodukte der C4-Stufe
Die erste Runde zeigt alle Zwischenstufen an einer C4-Kette. Die Namen wechseln zwischen systematischer und Trivialbezeichnung. Die Reihenfolge mit beiden Namen wird im Examen gerne gefragt, achte besonders auf Crotonyl-ACP als Synonym für trans-But-2-enoyl-ACP.
| Stufe | Name | Synonym | Merkmal |
|---|---|---|---|
| Baustein | Malonyl-CoA | – | C3-Dicarbonsäure-Thioester |
| nach Kondensation | Acetoacetyl-ACP | 3-Oxobutanoyl-ACP | C=O an C-3 |
| nach 1. Reduktion | 3-Hydroxybutanoyl-ACP | 3-Hydroxybutyryl-ACP | OH an C-3 |
| nach Dehydratisierung | trans-But-2-enoyl-ACP | Crotonyl-ACP | trans-C=C zwischen C-2 und C-3 |
| nach 2. Reduktion | Butanoyl-ACP | Butyryl-ACP | gesättigt |
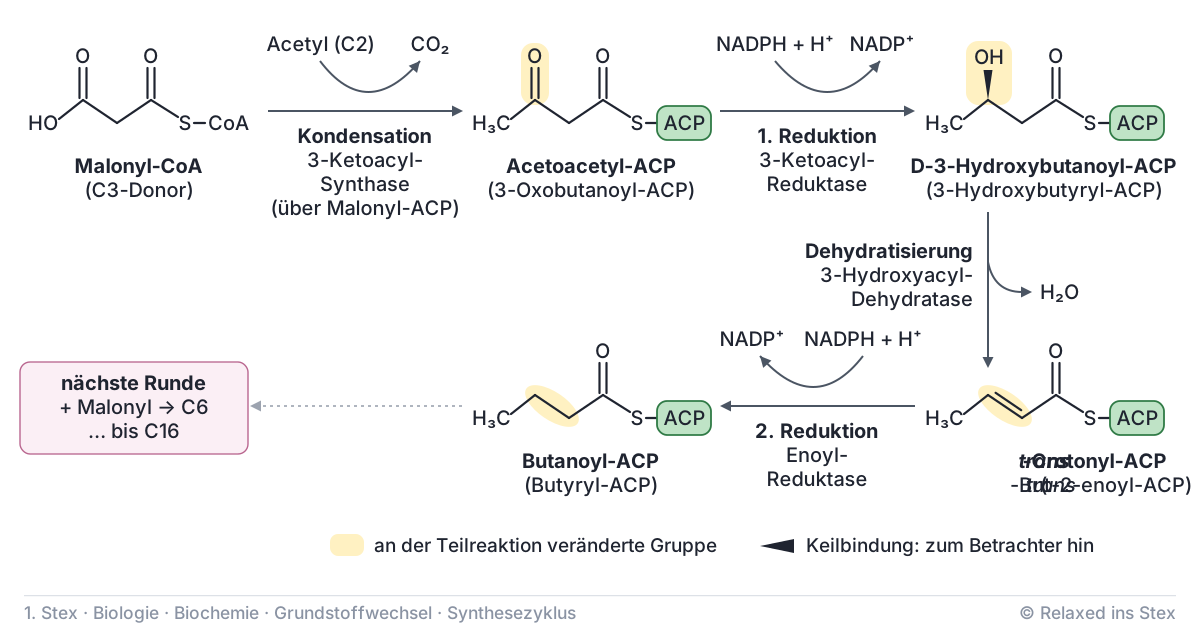
Die Kettenlänge wächst immer um zwei. Der Starter Acetyl liefert zwei C-Atome. Jedes Malonyl bringt drei C-Atome mit, verliert aber eines als \(\ce{CO2}\). Deshalb sind alle Zwischenstufen geradzahlig: C4, C6 und so weiter bis C16. Ein Propanoyl-ACP mit drei C-Atomen kommt bei der Synthese von Palmitin- oder Stearinsäure nicht vor.
Zyklus im Zusammenhang
Nach der Beladung trägt das kondensierende Enzym den Acetylrest an einem Cystein, das ACP den Malonylrest an seinem Phosphopantethein-Arm. Dann folgen fünf Schritte:
- Decarboxylierende Kondensation: Das kondensierende Enzym verknüpft Acyl- und Malonylrest unter \(\ce{CO2}\)-Abspaltung zum 3-Ketoacyl-ACP.
- Ketoacyl-Reduktion: Die Ketoacyl-Reduktase reduziert die Oxogruppe an C-3 mit NADPH zum 3-Hydroxyacyl-ACP.
- Dehydratisierung: Die Hydroxyacyl-Dehydratase spaltet Wasser ab, es entsteht trans-2-Enoyl-ACP.
- Enoyl-Reduktion: Die Enoyl-Reduktase hydriert die C=C-Bindung mit NADPH zum gesättigten Acyl-ACP.
- Übertragung: Der Acylrest wandert vom ACP auf die Cystein-SH des kondensierenden Enzyms. Das ACP ist frei für den nächsten Malonylrest.
Kondensation, Reduktion, Dehydratisierung, Reduktion: Ketogruppe, Alkohol, Alken, Alkan. Erst danach wechselt der Rest vom ACP zum Cystein.
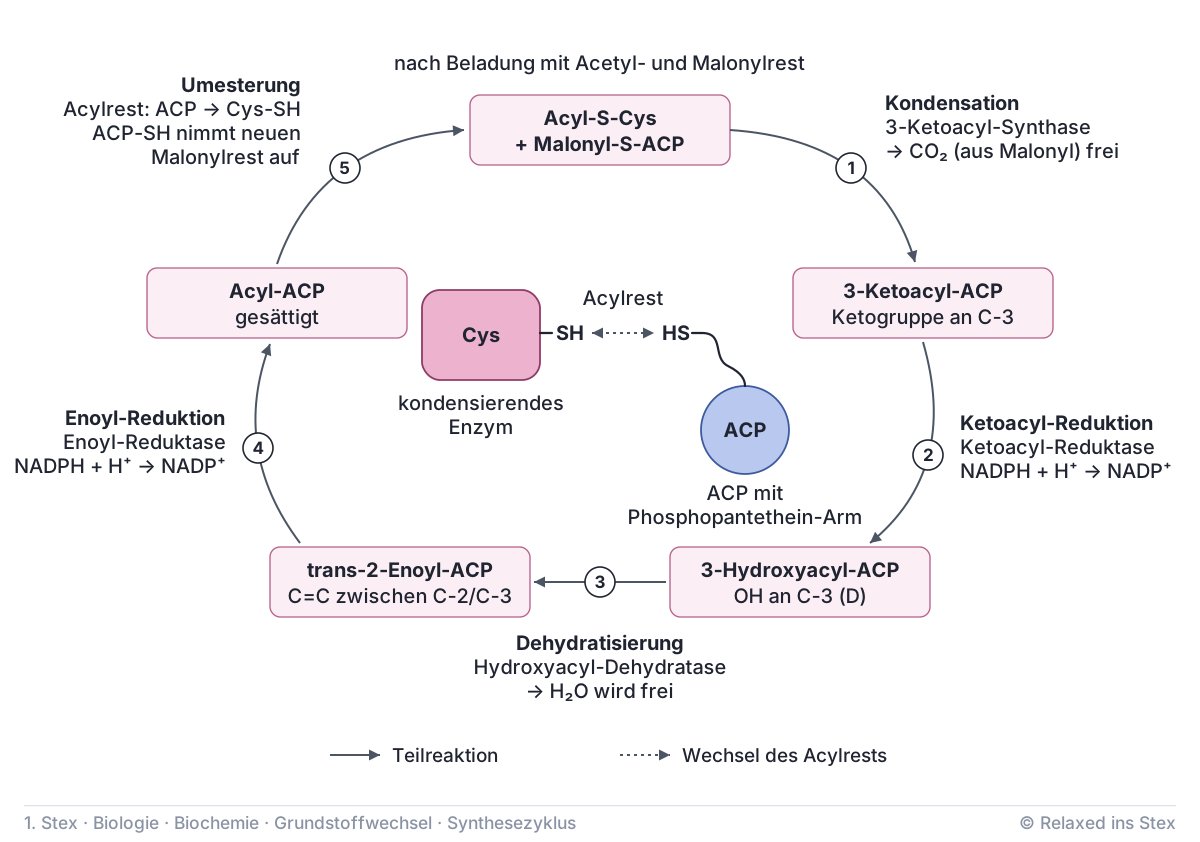
Sieben Runden führen vom Acetyl zum Palmitoylrest. Eine Thioesterase setzt dann Palmitat frei. Die Bilanz zeigt die zweimal sieben Reduktionen:
\[\text{Acetyl-CoA} + 7\,\text{Malonyl-CoA} + 14\,\ce{NADPH} + 14\,\ce{H+} \rightarrow \text{Palmitat} + 7\,\ce{CO2} + 14\,\ce{NADP+} + 8\,\text{CoA} + 6\,\ce{H2O}\]
Der Reaktionszyklus der Fettsäuresynthase ist ein Examensklassiker: Kondensation unter \(\ce{CO2}\)-Abgabe, Reduktion der 3-Oxogruppe, Dehydratisierung, Enoyl-Reduktion, dann Übertragung des Acylrests vom ACP auf eine andere Thiolgruppe. Achte an Strukturformeln auf die Gruppe an C-3 und auf die trans-Konfiguration der Doppelbindung.
An einer Strukturformel erkennst du die Stufe an zwei Stellen. Ein Thioester \(\ce{-CO-S-}\) mit ACP oder Enzym zeigt, dass die Kette noch gebunden ist. Der Zustand von C-2 und C-3 verrät den Schritt. Eine Oxogruppe an C-3 heißt: direkt nach der Kondensation. Eine OH-Gruppe an C-3 heißt: nach der ersten Reduktion. Eine Doppelbindung zwischen C-2 und C-3 heißt: nach der Dehydratisierung. Eine gesättigte Kette ist fertig für die Übertragung.
Bei der Doppelbindung prüfst du Lage und Konfiguration. Richtig ist nur trans (E) zwischen C-2 und C-3. Ein Schema mit cis-Doppelbindung oder mit einer Doppelbindung zwischen C-3 und C-4 beschreibt keinen Schritt dieses Zyklus.
Produkte und Elongation
Das Hauptprodukt der Synthase ist Palmitat, die gesättigte C16-Fettsäure. Die Synthase bildet nur gesättigte Fettsäuren. Ihre einzige Doppelbindung entsteht vorübergehend im Zyklus und wird sofort wieder reduziert. Doppelbindungen durch Dehydrogenierung einzuführen, übernehmen eigene Desaturasen am endoplasmatischen Retikulum.
Auch die Kettenlänge ist begrenzt. Ab etwa C16 entlässt die Thioesterase die Kette. Für Stearinsäure und längere Fettsäuren braucht die Zelle zusätzlich Elongasen.
Ein Enzymsystem vor allem am endoplasmatischen Retikulum, das fertige Acyl-CoA um je zwei C-Atome aus Malonyl-CoA verlängert. Es nutzt dieselbe Folge aus Kondensation, Reduktion, Dehydratisierung und Reduktion, aber mit CoA statt ACP als Träger.
So wird aus Palmitoyl-CoA in einem Elongationsschritt Stearoyl-CoA mit 18 C-Atomen.
Quiz
Aussage 1
Nach der Enoyl-Reduktion wird der gesättigte Acylrest vom ACP auf eine Cystein-Thiolgruppe des kondensierenden Enzyms übertragen.
Diese Übertragung schließt die Runde ab und macht das ACP frei für den nächsten Malonylrest.
Aussage 2
Crotonyl-ACP entsteht durch Wasserabspaltung direkt aus 3-Hydroxybutanoyl-ACP.
Crotonyl-ACP ist trans-But-2-enoyl-ACP, das Produkt der Dehydratisierung in der ersten Runde.
Aussage 3
Die Fettsäuresynthase führt durch Dehydrogenierung Doppelbindungen ein und bildet so direkt ungesättigte Fettsäuren.
Die Synthase bildet nur gesättigte Fettsäuren wie Palmitat; Doppelbindungen führen Desaturasen ein.
Aussage 4
Jede Verlängerungsrunde der Fettsäuresynthase verbraucht zwei Moleküle \(\ce{NADPH + H+}\).
Je ein NADPH wird für die Ketoacyl-Reduktion und für die Enoyl-Reduktion gebraucht.
Aussage 5
Das Wasserstoff übertragende Cosubstrat der Fettsäuresynthase der Säugetiere ist \(\ce{NADH + H+}\).
Die Synthase nutzt \(\ce{NADPH + H+}\); das NAD-System dient vor allem dem Abbau.
Aussage 6
Im Acetoacetyl-ACP greift die Ketoacyl-Reduktase an der Oxogruppe des C-3 an, also am β-C-Atom.
Gezählt wird ab dem Thioester-C (C-1); die zu reduzierende Ketogruppe sitzt am C-3.
Aussage 7
Die Dehydratisierung des 3-Hydroxyacyl-ACP liefert ein cis-2-Enoyl-ACP.
Die Dehydratase bildet ausschließlich das trans-(E)-2-Enoyl-ACP.
Aussage 8
Propanoyl-ACP tritt als Zwischenstufe bei der Biosynthese der Palmitinsäure auf.
Die Kette wächst vom Acetylstarter aus in C2-Schritten; alle Zwischenstufen sind geradzahlig.
Fehler entdeckt oder eine Idee? Wir verbessern die Inhalte laufend. Melde es uns gerne über dieses Formular ❤️
Teile der Inhalte wurden mithilfe von KI-Systemen erstellt und werden fortlaufend redaktionell geprüft. Trotz Sorgfalt können Fehler enthalten sein. Wichtige Informationen bitte anhand offizieller Quellen prüfen. Relaxed ins Stex ist ein unabhängiges Angebot und steht in keiner Kooperation mit dem IMPP. Das Angebot ist weder vom IMPP autorisiert noch mit diesem verbunden.