Kompetitive Hemmung und Lineweaver-Burk-Diagramm
Kompetitive Hemmstoffe konkurrieren als Strukturanaloga mit dem Substrat um das aktive Zentrum. Sie erhöhen den apparenten \(K_M\), lassen \(v_{max}\) unverändert und zeigen sich im Lineweaver-Burk-Diagramm durch einen gemeinsamen Ordinatenschnittpunkt.
Das Wichtigste in Kürze
- Die kompetitive Hemmung ist eine reversible Enzymhemmung, bei der ein Strukturanalogon des Substrats mit diesem um das aktive Zentrum konkurriert.
- Reversible Hemmstoffe binden nichtkovalent im Gleichgewicht, irreversible meist kovalent und dauerhaft.
- Durch Substratüberschuss wird der kompetitive Hemmstoff verdrängt. Das Ausmaß der Hemmung hängt von der Substratkonzentration ab.
- Kompetitive Hemmung erhöht den apparenten \(K_M\) und lässt \(v_{max}\) unverändert.
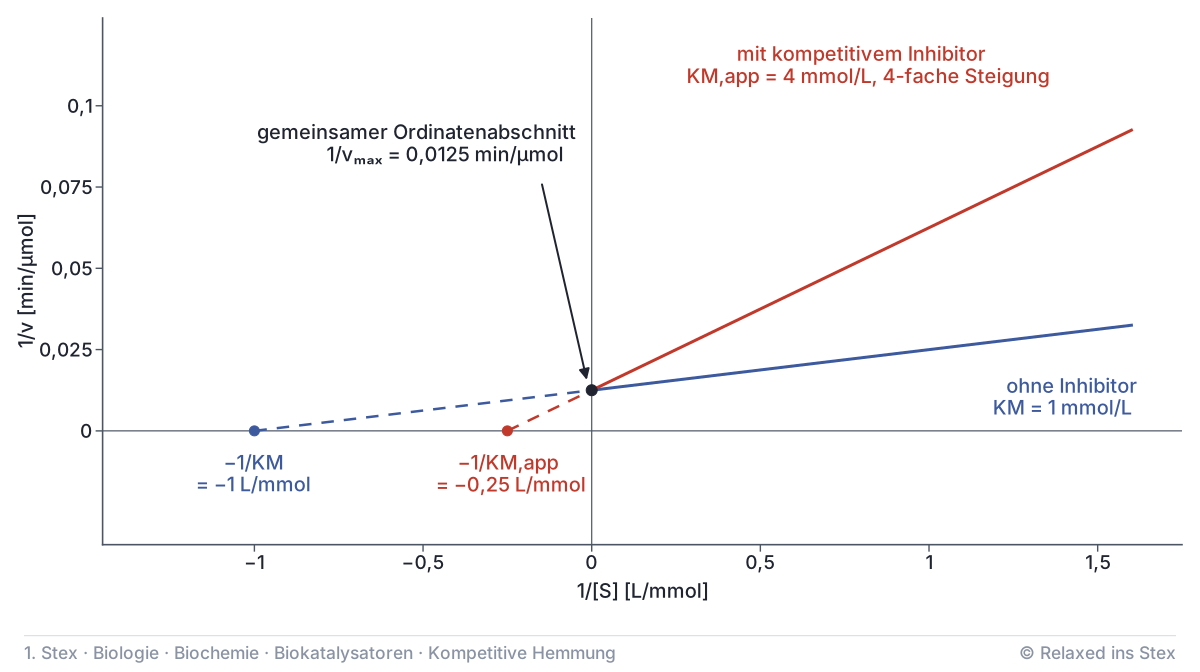
- Im Lineweaver-Burk-Diagramm (\(1/v\) gegen \(1/[S]\)) liegt der Abszissenabschnitt bei \(-1/K_M\). Bei kompetitiver Hemmung schneiden sich die Geraden auf der Ordinate bei \(1/v_{max}\).
- Sulfonamide ähneln PABA und hemmen kompetitiv die bakterielle Dihydropteroat-Synthase und damit die Dihydrofolsäure-Biosynthese.
Worum es geht
Viele Arzneistoffe wirken, weil sie ein Enzym hemmen. Die kompetitive Hemmung ist der einfachste Hemmtyp: Der Hemmstoff ähnelt dem Substrat und blockiert den Platz, an dem das Substrat umgesetzt wird. Ihre kinetischen Kennzeichen braucht man, um Hemmtypen in Diagrammen zu erkennen und Wirkstoffe wie die Sulfonamide einzuordnen.
Enzymhemmung im Überblick
Ein Inhibitor (Hemmstoff) ist ein Molekül, das an ein Enzym bindet und dessen katalytische Aktivität senkt. Hemmstoffe lassen sich nach zwei Fragen ordnen: Wie fest bindet der Hemmstoff? Und wo am Enzym bindet er?
Die erste Frage trennt reversible von irreversibler Hemmung.
Der Hemmstoff bindet nichtkovalent. Es stellt sich ein Gleichgewicht zwischen freiem Enzym und Enzym-Inhibitor-Komplex ein. Wird der Hemmstoff entfernt, etwa durch Verdünnung oder Dialyse, kehrt die volle Aktivität zurück.
Der Hemmstoff bindet meist kovalent und schaltet das Enzym dauerhaft aus. Erst neu gebildetes Enzym ist wieder aktiv. Beispiel: Acetylsalicylsäure acetyliert die Cyclooxygenase.
Ein Sonderfall der irreversiblen Hemmung ist der Suizidinhibitor. Das Enzym setzt ihn wie ein Substrat um und erzeugt dabei selbst eine reaktive Form, die es kovalent blockiert.
Die zweite Frage betrifft den Bindungsort. Bindet der Hemmstoff im aktiven Zentrum, hemmt er kompetitiv. Bindet er an einer anderen Stelle, liegt eine nicht-kompetitive Hemmung oder eine allosterische Regulation vor.
Strukturanaloga am aktiven Zentrum
Ein kompetitiver Hemmstoff gleicht dem Substrat in Form und Ladungsverteilung so sehr, dass er in dasselbe aktive Zentrum passt. Man kann ihn sich wie einen Nachschlüssel vorstellen, der ins Schloss passt, sich aber nicht drehen lässt. Er besetzt den Platz, wird aber nicht umgesetzt.
Reversible Hemmung, bei der ein Strukturanalogon des Substrats mit diesem um das aktive Zentrum konkurriert. Das Enzym bindet entweder Substrat oder Hemmstoff, nie beide zugleich.
Daraus folgen zwei konkurrierende Gleichgewichte:
\[\ce{E + S <=> ES -> E + P}\]
\[\ce{E + I <=> EI}\]
Der Komplex \(\ce{EI}\) bildet kein Produkt. Der Hemmstoff reagiert auch nicht mit einem bereits gebundenen Substrat, denn ist das Zentrum besetzt, kommt er gar nicht heran. Einen Komplex aus Enzym, Substrat und Inhibitor gibt es hier nicht.
Entscheidend ist also die Ähnlichkeit zwischen Hemmstoff und Substrat. Davon zu trennen ist die Endprodukthemmung. Dort hemmt das Endprodukt eines Stoffwechselwegs ein frühes Enzym, obwohl es dem Substrat meist gar nicht ähnelt. Es bindet an einer allosterischen Stelle und wirkt deshalb nicht kompetitiv.
Dass Substratanaloga kompetitiv hemmen, ist besonders prüfungsrelevant: Achte auf das Begriffspaar Strukturähnlichkeit zum Substrat und Bindung im aktiven Zentrum. Viele Arzneistoffe nutzen dieses Prinzip:
- Methotrexat, ein Folsäureanalogon, hemmt die Dihydrofolat-Reduktase.
- Statine ähneln dem Substrat HMG-CoA und hemmen die HMG-CoA-Reduktase.
- Sulfonamide ähneln der p-Aminobenzoesäure (siehe unten).
Reversibilität und apparenter \(K_M\)
Kompetitive Hemmung ist reversibel. Der Hemmstoff bindet nichtkovalent und löst sich ständig wieder ab. Ein dauerhafter, irreversibler Enzym-Inhibitor-Komplex entsteht nicht.
Weil Substrat und Hemmstoff um denselben Platz konkurrieren, entscheidet ihr Mengenverhältnis. Erhöht man die Substratkonzentration, verschiebt sich das Gleichgewicht zugunsten von \(\ce{ES}\). Das Substrat verdrängt den Hemmstoff aus dem aktiven Zentrum. Das Ausmaß der Hemmung hängt also von der Substratkonzentration ab. Bei sehr hohem Substratüberschuss ist sie praktisch aufgehoben.
Das hat zwei Folgen für die Michaelis-Menten-Kinetik:
- \(v_{max}\) bleibt gleich. Bei sättigender Substratkonzentration liegt wieder fast alles Enzym als \(\ce{ES}\) vor.
- Der apparente \(K_M\) steigt. Man braucht mehr Substrat, um die halbmaximale Geschwindigkeit zu erreichen.
Der Zusatz „apparent“ (scheinbar) ist wichtig. Das Enzym selbst ändert sich nicht. Ein Teil der Enzymmoleküle ist nur zeitweise besetzt, sodass die Affinität zum Substrat geringer erscheint. Quantitativ gilt \(K_{M,app} = K_M \cdot (1 + [I]/K_I)\). Dabei ist \([I]\) die Inhibitorkonzentration und \(K_I\) die Dissoziationskonstante des Komplexes \(\ce{EI}\), beide in mol/L.
Kompetitive Hemmung wird im Examen gerne gefragt: Sie ist reversibel, lässt sich durch Substratüberschuss aufheben, erhöht den apparenten \(K_M\) und lässt \(v_{max}\) unverändert. Achte darauf, dass sich \(K_M\) und nicht \(v_{max}\) ändert.
Kompetitive Hemmung ist auch kein allosterischer Effekt. Ein allosterischer Effektor bindet an einer eigenen Stelle und verändert die Konformation des Enzyms. Der kompetitive Hemmstoff dagegen wirkt allein durch Platzbesetzung im aktiven Zentrum.
Lineweaver-Burk-Diagramm
Die Sättigungskurve ist eine Hyperbel. Ihr Plateau \(v_{max}\) lässt sich nur ungenau ablesen. Das Lineweaver-Burk-Diagramm löst das Problem: Man trägt die Kehrwerte \(1/v\) gegen \(1/[S]\) auf. Diese doppelt reziproke Auftragung macht aus der Hyperbel eine Gerade.
\[\frac{1}{v} = \frac{K_M}{v_{max}} \cdot \frac{1}{[S]} + \frac{1}{v_{max}}\]
\(v\) Reaktionsgeschwindigkeit (z. B. µmol/min), \([S]\) Substratkonzentration (mmol/L), \(K_M\) Michaelis-Konstante (mmol/L), \(v_{max}\) Maximalgeschwindigkeit.
Aus der Geraden liest man drei Größen ab:
- Ordinatenabschnitt: \(1/v_{max}\)
- Abszissenabschnitt (extrapoliert): \(-1/K_M\)
- Steigung: \(K_M/v_{max}\)
Bei kompetitiver Hemmung bleibt \(v_{max}\) gleich. Beide Geraden schneiden sich deshalb auf der Ordinate. Der apparente \(K_M\) ist größer, also liegt \(-1/K_{M,app}\) näher am Ursprung. Die Gerade mit Inhibitor verläuft steiler. Bei nicht-kompetitiver Hemmung liegt der Schnittpunkt dagegen auf der Abszisse, wie die Nachbareinheit zeigt.
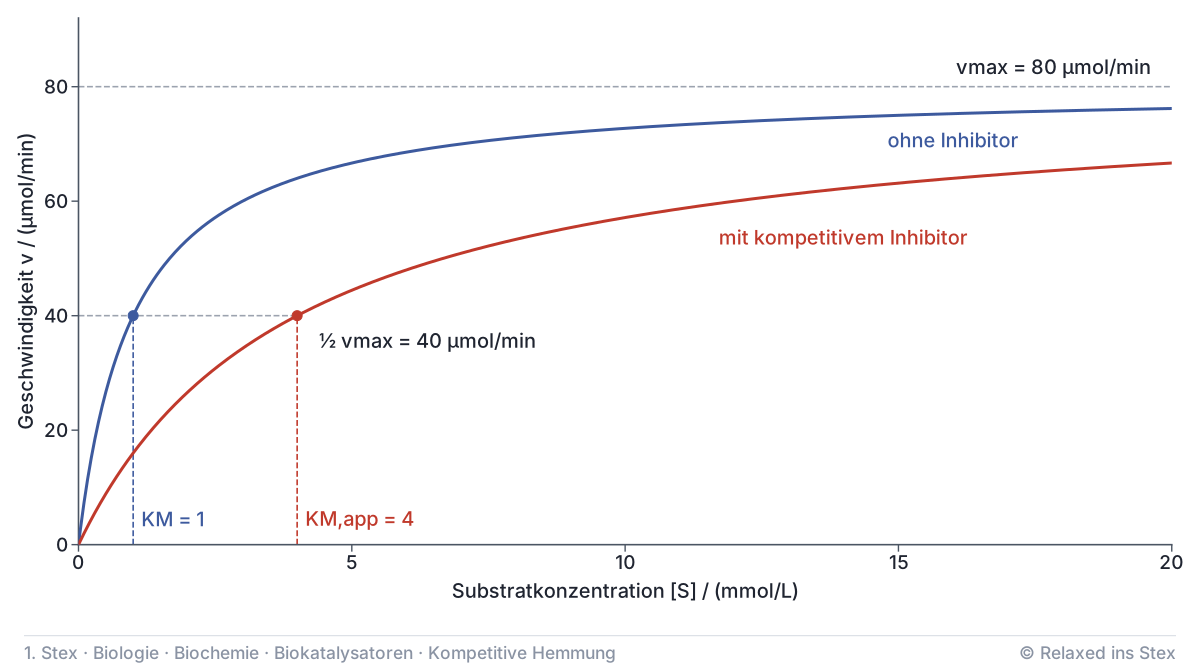
Oft liegt nur ein Michaelis-Menten-Diagramm vor. Die Abbildung zeigt zwei Kurven mit gleichem Plateau von 80 µmol/min. Die halbmaximale Geschwindigkeit von 40 µmol/min erreichen sie bei 1 mmol/L und bei 4 mmol/L.
So leitest du daraus den Hemmtyp ab und überträgst ihn auf die doppelt reziproke Auftragung:
- \(v_{max}\) vergleichen: Beide Kurven streben 80 µmol/min zu. \(v_{max}\) ist unverändert.
- \(K_M\) vergleichen: Mit Inhibitor steigt er von 1 auf 4 mmol/L. Gleiches \(v_{max}\) und höherer \(K_M\) bedeuten kompetitive Hemmung.
- Ordinate berechnen: \(1/v_{max} = 1/80\) min/µmol \(= 0{,}0125\) min/µmol. Beide Geraden treffen sich dort.
- Abszisse berechnen: ohne Inhibitor \(-1\) L/mmol, mit Inhibitor \(-0{,}25\) L/mmol. Die gehemmte Gerade ist viermal so steil.
Die Differenz der \(K_M\)-Werte ist nicht die Inhibitorkonzentration. Wie stark \(K_M\) steigt, hängt vom Verhältnis \([I]/K_I\) ab. Ohne \(K_I\) lässt sich \([I]\) aus dem Diagramm nicht bestimmen.
Sulfonamide
Bakterien müssen Folsäure selbst herstellen. Ein Baustein dafür ist p-Aminobenzoesäure (PABA). Sulfonamide wie Sulfanilamid tragen denselben Grundkörper: einen Benzolring mit para-ständiger Aminogruppe. Statt der Carboxylgruppe besitzen sie eine Sulfonamidgruppe.
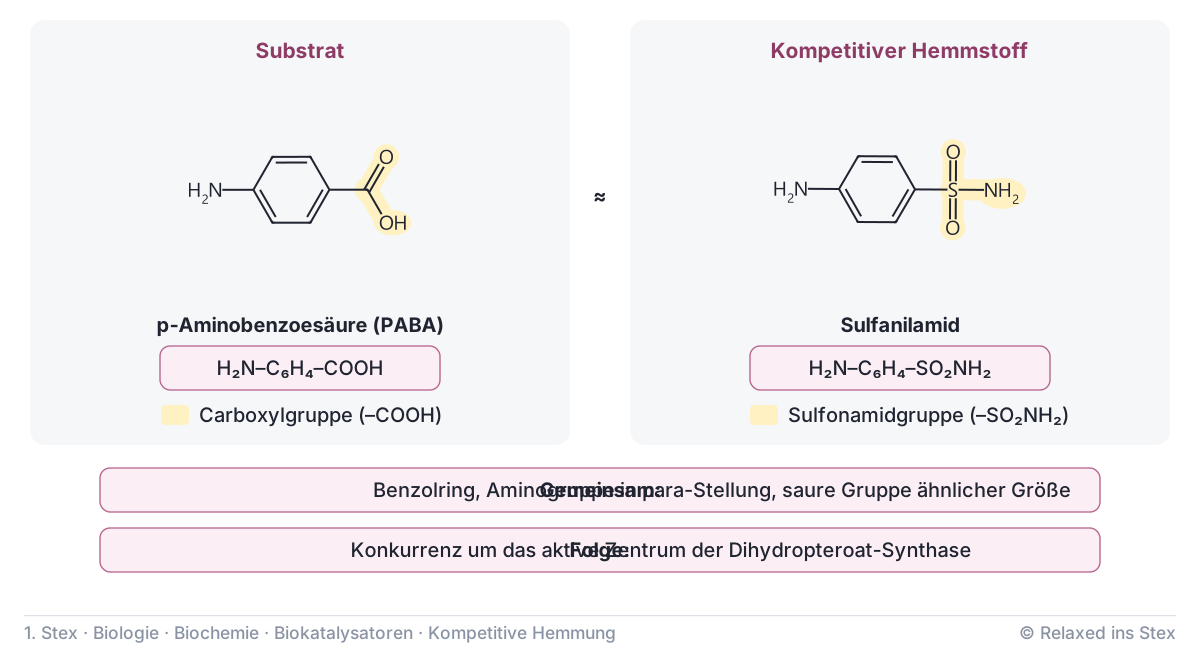
Wegen dieser Ähnlichkeit besetzen Sulfonamide das aktive Zentrum der Dihydropteroat-Synthase. Dieses Enzym verknüpft normalerweise PABA mit einem Dihydropterin zur Dihydropteroinsäure. Daraus entsteht Dihydrofolsäure und schließlich Tetrahydrofolsäure. Ihre Bausteine und ihre Rolle als Cofaktor sind an anderer Stelle erklärt. Sulfonamide sind damit kompetitive Inhibitoren der bakteriellen Dihydrofolsäure-Biosynthese. Sie verhindern den Einbau von PABA in Folsäure.
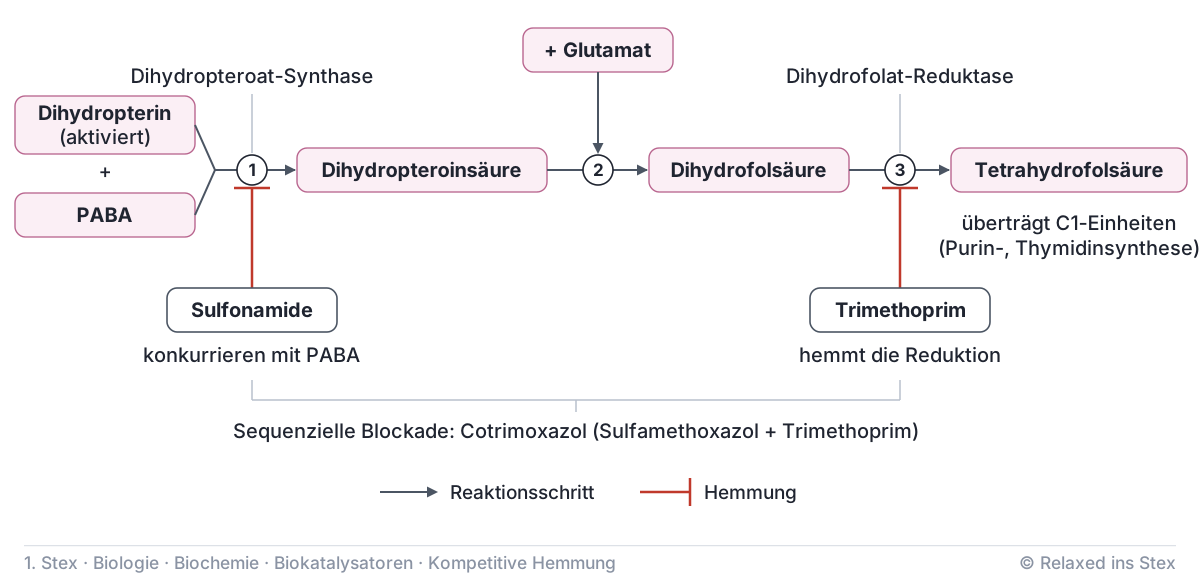
Der Mensch nimmt Folsäure mit der Nahrung auf und besitzt das Enzym nicht. Deshalb treffen Sulfonamide selektiv die Bakterien. Trimethoprim hemmt ein späteres Enzym, die Dihydrofolat-Reduktase. Die Kombination beider Wirkstoffe ist Cotrimoxazol.
Sulfonamide konkurrieren reversibel mit PABA. Hohe PABA-Konzentrationen können ihre Wirkung daher abschwächen, ganz wie es die Kinetik erwarten lässt. Sie binden im aktiven Zentrum und nicht an einer allosterischen Stelle. Anders als ein Suizidinhibitor werden sie auch nicht zu einer reaktiven Form umgesetzt, die das Enzym kovalent blockiert. Wie Bakterien gegen Sulfonamide resistent werden, behandelt die Einheit zur Antibiotikaresistenz.
Quiz
Aussage 1
Eine kompetitive Hemmung lässt sich aufheben, indem man die Substratkonzentration stark erhöht.
Substrat und Hemmstoff konkurrieren reversibel um das aktive Zentrum. Ein Substratüberschuss verschiebt das Gleichgewicht zum ES-Komplex.
Aussage 2
Sulfonamide hemmen die bakterielle Folsäuresynthese, weil sie der p-Aminobenzoesäure strukturell ähneln.
Sulfanilamid und PABA besitzen denselben Grundkörper mit para-ständiger Aminogruppe. Als Strukturanalogon verhindert das Sulfonamid den Einbau von PABA.
Aussage 3
Im Lineweaver-Burk-Diagramm schneiden sich die Geraden mit und ohne kompetitiven Inhibitor auf der Abszisse.
Da \(v_{max}\) gleich bleibt, schneiden sie sich auf der Ordinate bei \(1/v_{max}\). Ein Schnittpunkt auf der Abszisse kennzeichnet die nicht-kompetitive Hemmung.
Aussage 4
In Gegenwart eines kompetitiven Inhibitors erreicht ein Enzym bei sättigender Substratkonzentration dieselbe Maximalgeschwindigkeit wie ohne Inhibitor.
Bei sehr hoher Substratkonzentration verdrängt das Substrat den Hemmstoff. Es liegt wieder fast alles Enzym als ES-Komplex vor, daher bleibt \(v_{max}\) unverändert.
Aussage 5
Verlängert man die Gerade einer doppelt reziproken Auftragung von \(1/v\) gegen \(1/[S]\), schneidet sie die Abszisse bei \(-1/K_M\).
Setzt man in der Lineweaver-Burk-Gleichung \(1/v = 0\), ergibt sich \(1/[S] = -1/K_M\).
Aussage 6
Die Endprodukthemmung eines Stoffwechselwegs ist eine kompetitive Hemmung, weil das Endprodukt dem Substrat des ersten Enzyms strukturell ähnelt.
Das Endprodukt ähnelt dem Substrat meist nicht und bindet an einer allosterischen Stelle. Kompetitiv hemmen Strukturanaloga des Substrats, die im aktiven Zentrum binden.
Aussage 7
Sulfonamide sind Suizidinhibitoren, die die Dihydropteroat-Synthase durch kovalente Bindung dauerhaft ausschalten.
Sulfonamide konkurrieren reversibel mit PABA um das aktive Zentrum. Sie sind kompetitive Inhibitoren.
Fehler entdeckt oder eine Idee? Wir verbessern die Inhalte laufend. Melde es uns gerne über dieses Formular ❤️
Teile der Inhalte wurden mithilfe von KI-Systemen erstellt und werden fortlaufend redaktionell geprüft. Trotz Sorgfalt können Fehler enthalten sein. Wichtige Informationen bitte anhand offizieller Quellen prüfen. Relaxed ins Stex ist ein unabhängiges Angebot und steht in keiner Kooperation mit dem IMPP. Das Angebot ist weder vom IMPP autorisiert noch mit diesem verbunden.