Meristeme: Bildungsgewebe der Samenpflanzen
Wie teilungsfähige Gewebe gebaut sind und welche Dauergewebe Apikal-, Rest- und Folgemeristeme der Samenpflanzen hervorbringen.
Das Wichtigste in Kürze
- Meristeme sind Bildungsgewebe aus undifferenzierten, teilungsfähigen Zellen, aus denen sich alle Dauergewebe differenzieren.
- Meristemzellen sind plasmareich, haben keine Zentralvakuole, nur unverdickte Wände und bilden einen Verband ohne Interzellularen.
- Das Spitzenwachstum von Spross und Wurzel geht von einem Urmeristem aus, das schon im Embryo angelegt wird; das Sprossapikalmeristem bildet Blatt- und Seitensprossanlagen und bleibt auch beim sekundären Dickenwachstum aktiv.
- Die Kalyptra schützt den Wurzelscheitel und wird vom Kalyptrogen gebildet, einem Primärmeristem.
- Aus dem Protoderm entstehen Epidermis und Rhizodermis, aus dem Grundmeristem die primäre Rinde, aus dem Prokambium das primäre Leitgewebe.
- Das faszikuläre Kambium ist in der Regel ein Restmeristem aus dem Prokambium, das Phellogen ein bipolar tätiges Folgemeristem, das das Periderm bildet.
Worum es geht
Pflanzen wachsen ihr Leben lang, aber nur an wenigen Orten mit teilungsfähigem Gewebe, den Meristemen. Sie erklären, woher Epidermis, Leitgewebe und Kork stammen. Dieses Wissen braucht man, um Schnitte von Wurzel-, Rinden- und Holzdrogen richtig zu deuten.
Bildungs- und Dauergewebe
Bei Pflanzen versteht man unter einem Gewebe einen Verband von Zellen, die gleich gebaut sind, gemeinsam entstehen und dieselbe Aufgabe erfüllen. Grob lassen sich zwei Gruppen unterscheiden. Bildungsgewebe teilen sich und liefern ständig neue Zellen. Dauergewebe sind aus diesen Zellen hervorgegangen. Sie haben sich auf eine Funktion spezialisiert und teilen sich in der Regel nicht mehr.
Ein Meristem ist ein Bildungsgewebe aus undifferenzierten, teilungsfähigen Zellen. Durch fortgesetzte Teilungen liefert es die Zellen, aus denen sich alle Dauergewebe differenzieren.
Anders als Tiere wachsen Pflanzen zeitlebens weiter, aber nur an diesen Bildungsorten. Man ordnet die Meristeme nach ihrer Herkunft. Primäre Meristeme stammen ohne Unterbrechung vom Embryo ab. Dazu gehören die Meristeme an Spross- und Wurzelspitze und die direkt aus ihnen abgeleiteten Gewebe. Sekundäre Meristeme entstehen erst später aus Dauergewebe, das wieder teilungsfähig wird.
Für die Beschreibung der Zellen braucht man zwei Formbegriffe:
In allen Raumrichtungen etwa gleich lang, also würfelig bis kugelig. Typisch für Parenchymzellen und die Zellen am Spross- und Wurzelscheitel.
Deutlich langgestreckt, oft spindelförmig mit zugespitzten Enden. Typisch für Fasern, Leitelemente und die Initialen des Kambiums.
Merkmale meristematischer Zellen
Meristemzellen sind nicht ausdifferenziert. Sie haben noch keine Spezialaufgabe und stecken ihre Ressourcen in die Zellteilung. Daraus ergeben sich ihre typischen Merkmale:
- plasmareich mit großem Zellkern, das Cytoplasma füllt die Zelle aus
- höchstens kleine Vakuolen, aber keine Zentralvakuole
- ausschließlich dünne, unverdickte Zellwände
- lückenloser Zellverband ohne Interzellularen
- in primären Meristemen meist isodiametrisch
Damit unterscheiden sie sich klar von einer ausgewachsenen Parenchymzelle. Dort drückt die große Zentralvakuole das Plasma zu einem dünnen Wandbelag zusammen.
Die Zellform ist aber nicht festgelegt. Die Initialen des Apikalmeristems sind isodiametrisch, die Initialen des Kambiums dagegen prosenchymatisch. Auch eine feste radiäre Anordnung der Zellen gibt es in der Sprossachse nicht. Zwischen zwei Teilungen wachsen Meristemzellen wieder auf ihre Ausgangsgröße heran. Sie zeigen also Teilung und Streckungswachstum. Die starke Streckung samt Bildung der Zentralvakuole folgt erst beim Übergang ins Dauergewebe.
Apikalmeristeme und Spitzenwachstum
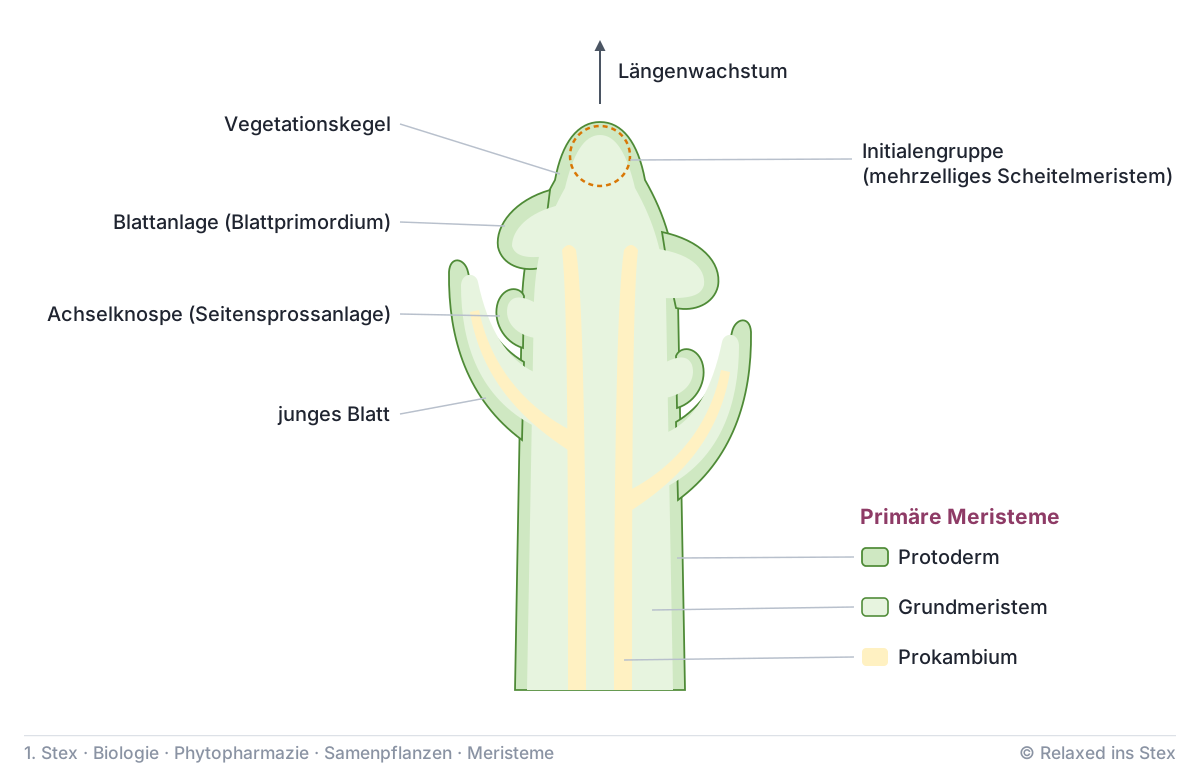
Am Anfang steht der Embryo. Schon früh in seiner Entwicklung werden zwei Pole angelegt: das Apikalmeristem des Sprosses und das der Wurzel. Wie der Embryo im Samen entsteht, behandelt die Seite zum Samen. Beide Pole bestehen aus Urmeristem, also aus Zellen, die nie etwas anderes als meristematisch waren. Das Spitzenwachstum von Sprossachse und Wurzel geht jeweils von einem solchen Urmeristem aus. Man nennt es Apikalmeristem oder Vegetationskegel.
Wie viele Zellen den Scheitel bilden, hängt von der Pflanzengruppe ab. Bei vielen Farnpflanzen genügt eine einzige Scheitelzelle, die nach mehreren Seiten Tochterzellen abgibt. Samenpflanzen besitzen dagegen ein mehrzelliges Scheitelmeristem. Beim Kormus kommen also beide Bauweisen vor.
Das Sprossapikalmeristem verlängert nicht nur die Achse. An seinen Flanken bildet es die Anlagen der Blätter und in deren Achseln die Anlagen der Seitensprosse. Es bleibt teilungsaktiv, solange der Spross wächst, auch nachdem das sekundäre Dickenwachstum eingesetzt hat. Für die Dicke ist es aber nicht zuständig. Diese liefern seitliche Meristeme, nämlich Kambium und Phellogen. Das Wachstum einer Angiosperme geht also nicht allein vom Scheitel aus.
Auch die Wurzelspitze trägt ein Urmeristem. Ihr Vegetationskegel ist ein echtes Bildungsgewebe, primäre Meristeme gibt es also auch in unterirdischen Organen. Der empfindliche Scheitel liegt allerdings nicht frei. Ihn umhüllt wie ein Fingerhut die Kalyptra oder Wurzelhaube. Sie schützt das Meristem, während sich die Wurzel durch den Boden schiebt. Ihre äußeren Randzellen lösen sich ab und verschleimen.
Neue Haubenzellen liefert das Kalyptrogen, ein Primärmeristem am Wurzelscheitel. Die Kalyptra stammt damit vom Scheitel und nicht vom Kambium der Wurzel. Hinter dem Meristem folgen Streckungszone und Wurzelhaarzone.
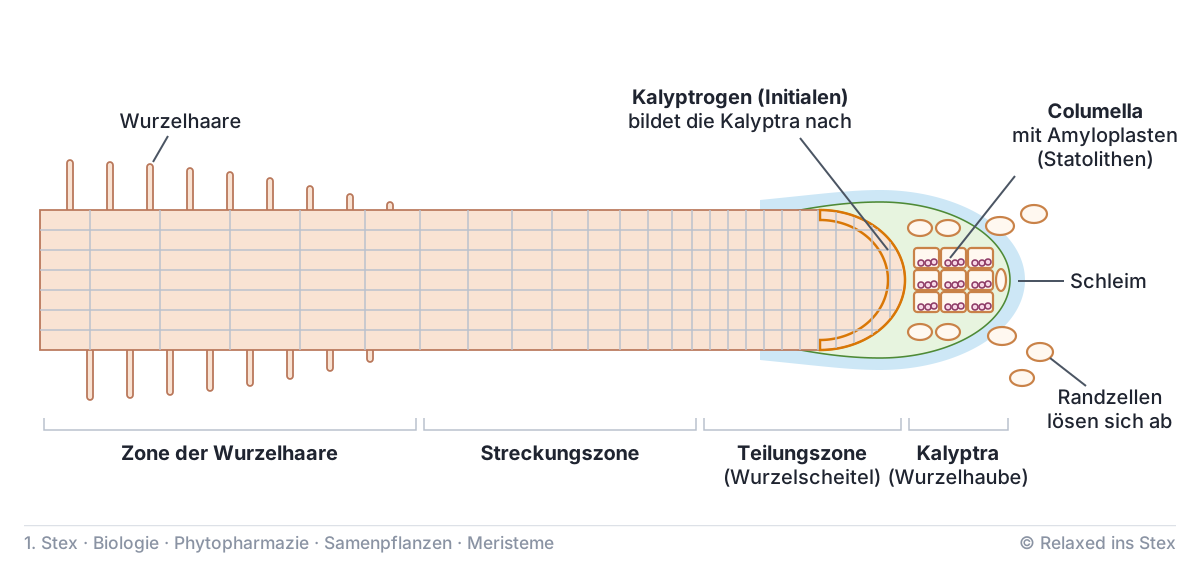
Gern gefragt wird im Examen die Einordnung der Scheitel: Sprossvegetationszone, Wurzelvegetationszone und Kalyptrogen sind primäre Meristeme. Ein sekundäres Meristem oder Folgemeristem ist keines von ihnen, denn ihr meristematischer Zustand reicht lückenlos bis zum Embryo zurück.
Protoderm, Grundmeristem, Prokambium
Kurz unterhalb des Scheitels gliedert sich das Urmeristem in drei primäre Meristeme. Sie sind in ihrer Entwicklungsrichtung schon festgelegt. Ihre Zellen sind aber noch teilungsfähig. Jedes liefert eine eigene Gruppe von Dauergeweben.
| Primäres Meristem | Lage | Daraus entsteht |
|---|---|---|
| Protoderm | äußerste Zellschicht | Epidermis (Spross), Rhizodermis (Wurzel) |
| Grundmeristem | zwischen Protoderm und Prokambium | Grundgewebe, z. B. primäre Rinde und Mark |
| Prokambium | Zellstränge im Inneren | primäres Xylem und Phloem, faszikuläres Kambium |
Die Epidermis des Sprosses geht also über das Protoderm auf ein Urmeristem zurück. Sie ist das primäre Abschlussgewebe. In der Wurzel bildet das Protoderm die Rhizodermis.
Die Zuordnung der inneren Gewebe ist eindeutig. Xylem und Phloem differenzieren sich aus dem Prokambium und nicht aus dem Grundmeristem. Die primäre Rinde dagegen stammt aus dem Grundmeristem und nicht aus dem Prokambium. Man kann sich das Prokambium als vorgezeichnetes Leitungsnetz vorstellen, das später mit Leitgewebe ausgebaut wird. Wie diese Gewebe im fertigen Querschnitt liegen, zeigt der primäre Bau der Sprossachse.
Rest- und Folgemeristeme
Nicht alle Meristeme sitzen am Scheitel. Nach ihrer Herkunft unterscheidet man zwei Typen. Bei einem Restmeristem lässt sich der meristematische Zustand ununterbrochen bis auf den Embryo zurückverfolgen. Es ist ein Rest des Urmeristems, der nie ausdifferenziert war, und zählt zu den primären Meristemen. Ein Folgemeristem oder sekundäres Meristem entsteht dagegen aus Dauergewebe, dessen Zellen die Teilungsfähigkeit wiedererlangt haben.
Diesen Rückweg nennt man Dedifferenzierung oder Reembryonalisierung. Lebende, ausdifferenzierte Dauerzellen, meist Parenchymzellen, bauen ihre Spezialisierung ab. Sie werden wieder plasmareich und beginnen sich zu teilen.
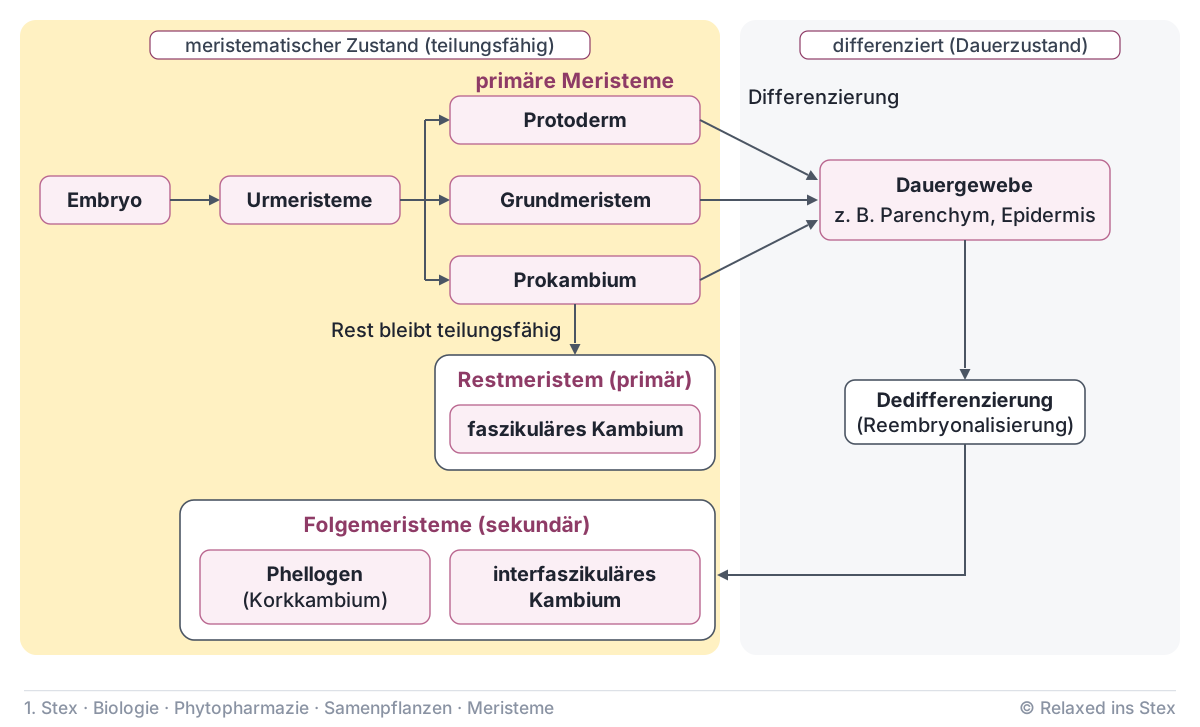
Restmeristem: hat nie aufgehört, sich zu teilen. Folgemeristem: hat nach einer Pause als Dauergewebe wieder damit angefangen.
Faszikuläres Kambium
Ein Kambium ist ein seitliches Meristem, das das sekundäre Dickenwachstum trägt. Es ist also kein Apikalmeristem. Kambien können Rest- oder Folgemeristeme sein, je nach Herkunft. In offen-kollateralen Leitbündeln liegt zwischen Xylem und Phloem ein schmaler Streifen teilungsfähiger Zellen. Dieses faszikuläre Kambium ist in der Regel ein Restmeristem aus dem Prokambium. Es ist damit ein primäres Meristem und ein Bildungsgewebe, aber kein Folgemeristem.
Es ist auch kein Meristemoid. So nennt man kleine, isolierte meristematische Zellgruppen im Dauergewebe, etwa die Anlagen von Drüsenhaaren. Wie das Kambium beim sekundären Dickenwachstum zum geschlossenen Ring wird, steht auf einer eigenen Seite.
Nur das faszikuläre Kambium im Bündel ist ein Restmeristem. Das interfaszikuläre Kambium zwischen den Bündeln entsteht durch Dedifferenzierung aus Parenchym und ist ein Folgemeristem.
Phellogen
Das wichtigste Folgemeristem für die Drogenkunde ist das Phellogen oder Korkkambium. Es wird nötig, wenn beim Dickenwachstum die Epidermis dem Umfang nicht mehr folgen kann. Dann dedifferenzieren Dauerzellen zu einer neuen Teilungsschicht. Im Spross liegen sie meist in Epidermis oder äußerer Rinde, in der Wurzel meist im Perizykel. Korkkambien entstehen also in Sprossachsen und in Wurzeln.
Das Phellogen arbeitet bipolar. Nach außen gibt es Phellem (Kork) ab, nach innen Phelloderm. Zusammen mit dem Phellogen bilden beide das Periderm, das sekundäre Abschlussgewebe. Es geht damit auf diese durchgehende Zellschicht zurück und nicht auf ein Meristemoid.
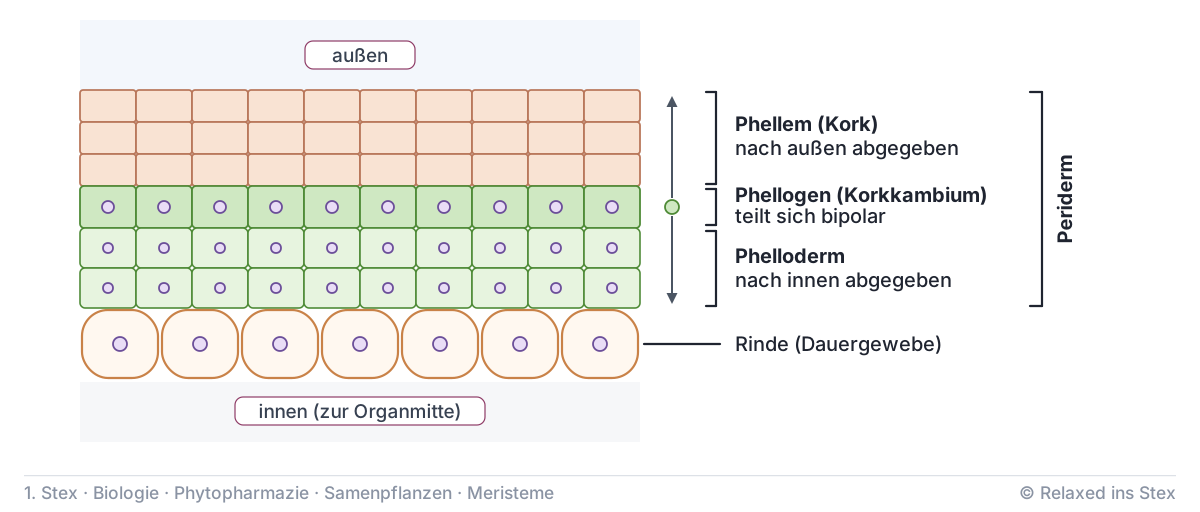
Wird im Examen gerne gefragt: Das Periderm stammt vom Phellogen, einem sekundären Meristem (Folgemeristem) aus dedifferenziertem Dauergewebe, also nicht von einem Primär- oder Restmeristem. Achte auf die Arbeitsteilung: Holzkörper und sekundäres Phloem liefert das Spross- bzw. Wurzelkambium, das Periderm allein das Phellogen.
Quiz
Aussage 1
Primäres Xylem und Phloem differenzieren sich aus dem Grundmeristem.
Das primäre Leitgewebe stammt aus dem Prokambium. Aus dem Grundmeristem entstehen Grundgewebe wie primäre Rinde und Mark.
Aussage 2
Das Phellogen gibt nach außen Phellem und nach innen Phelloderm ab.
Das Phellogen arbeitet bipolar. Phellem, Phellogen und Phelloderm bilden zusammen das Periderm.
Aussage 3
Die Kalyptra der Wurzel wird vom Wurzelkambium gebildet.
Die Kalyptra stammt vom Kalyptrogen, einem Primärmeristem am Wurzelscheitel, und nicht vom Kambium.
Aussage 4
Mit dem Einsetzen des sekundären Dickenwachstums stellt das Sprossapikalmeristem seine Teilungen ein.
Das Apikalmeristem bleibt auch während des sekundären Dickenwachstums teilungsaktiv. Die Dicke liefern seitliche Meristeme.
Aussage 5
Zellen primärer Meristeme besitzen eine große Zentralvakuole, die das Cytoplasma an die Zellwand drückt.
Primäre Meristemzellen sind plasmareich und haben höchstens kleine Vakuolen, aber keine Zentralvakuole.
Aussage 6
Das faszikuläre Kambium offen-kollateraler Leitbündel ist in der Regel ein Restmeristem, das auf das Prokambium zurückgeht.
Sein meristematischer Zustand reicht über das Prokambium lückenlos bis zum Embryo zurück, es ist also ein primäres Meristem.
Aussage 7
Das Protoderm bildet im Spross die Epidermis und in der Wurzel die Rhizodermis.
Beide primären Abschlussgewebe gehen aus dem Protoderm hervor.
Aussage 8
Das Phellogen entsteht durch Dedifferenzierung aus Dauergewebe und ist daher ein sekundäres Meristem.
Das Phellogen ist ein Folgemeristem, das in Sprossachsen und Wurzeln aus wieder teilungsfähig gewordenen Dauerzellen hervorgeht.
Fehler entdeckt oder eine Idee? Wir verbessern die Inhalte laufend. Melde es uns gerne über dieses Formular ❤️
Teile der Inhalte wurden mithilfe von KI-Systemen erstellt und werden fortlaufend redaktionell geprüft. Trotz Sorgfalt können Fehler enthalten sein. Wichtige Informationen bitte anhand offizieller Quellen prüfen. Relaxed ins Stex ist ein unabhängiges Angebot und steht in keiner Kooperation mit dem IMPP. Das Angebot ist weder vom IMPP autorisiert noch mit diesem verbunden.