Ertragsphase der Glykolyse und Energiebilanz
Die fünf Schritte von Glycerinaldehyd-3-phosphat bis Pyruvat, die beiden Substratkettenphosphorylierungen und die ATP-Bilanz der Glykolyse.
Das Wichtigste in Kürze
- Die Ertragsphase der Glykolyse führt in fünf Schritten von Glycerinaldehyd-3-phosphat zu Pyruvat und bildet dabei ATP durch Substratkettenphosphorylierung.
- Die GAPDH oxidiert GAP mit \(\ce{NAD+}\) und Phosphat über Thiohalbacetal und Thioester zu 1,3-BPG, einem gemischten Säureanhydrid. Dieser Schritt liefert selbst kein ATP.
- Phosphoglyceratkinase (1,3-BPG → 3-PG) und Pyruvatkinase (PEP → Pyruvat) übertragen Phosphat direkt auf ADP. Die Pyruvatkinase-Reaktion ist physiologisch irreversibel.
- Mutase und Enolase formen 3-PG über 2-PG unter Wasserabspaltung zum energiereichen Enolester PEP um, ohne ATP zu bilden.
- Netto entstehen pro Glucose 2 ATP, 2 \(\ce{NADH + H+}\) und 2 Pyruvat (4 ATP gebildet, 2 ATP investiert).
- Einziges Redox-Coenzym ist \(\ce{NAD+}\). \(\ce{NADP+}\), FAD, Cytochrome, Biotin und GTP sind an der Glykolyse unbeteiligt.
Worum es geht
Ab Glycerinaldehyd-3-phosphat gewinnt die Glykolyse die investierte Energie zurück und darüber hinaus. Fünf Enzyme führen bis zum Pyruvat, zwei davon bilden ATP direkt am Substrat. Allein dieser Weg versorgt etwa Erythrozyten mit ATP, da sie keine Mitochondrien besitzen.
GAP-Dehydrogenase
Die Ertragsphase beginnt mit den Triosephosphaten aus der Vorbereitungsphase. Weiterverarbeitet wird Glycerinaldehyd-3-phosphat (GAP). An der Strukturformel erkennst du es an drei Merkmalen: eine Aldehydgruppe an C-1, eine sekundäre OH-Gruppe an C-2 und ein Phosphorsäureester an C-3.
Die Glycerinaldehyd-3-phosphat-Dehydrogenase (GAPDH) oxidiert die Aldehydgruppe. Den Wasserstoff nimmt \(\ce{NAD+}\) auf. Gleichzeitig baut das Enzym anorganisches Phosphat ein. Die Reaktion ist reversibel:
\[\text{Glycerinaldehyd-3-phosphat} + \ce{NAD+} + \ce{P_i} \rightleftharpoons \text{1,3-Bisphosphoglycerat} + \ce{NADH + H+}\]
Der Weg über den Thioester
Die Energie der Oxidation soll nicht als Wärme verloren gehen. Deshalb läuft die Reaktion über eine enzymgebundene Zwischenstufe:
- Thiohalbacetal: Die SH-Gruppe eines Cysteins im aktiven Zentrum addiert an die Aldehydgruppe von GAP.
- Oxidation: Ein Hydrid-Ion geht auf \(\ce{NAD+}\) über. Es entsteht ein energiereicher Thioester am Enzym (Acyl-Enzym), \(\ce{NADH}\) wird frei.
- Phosphorolyse: Anorganisches Phosphat greift den Thioester an. Freigesetzt wird 1,3-Bisphosphoglycerat (1,3-BPG).
In einem Reaktionsschema erkennst du diesen Schritt am Übergang vom Aldehyd zur Acylgruppe, die am Schwefel des Enzyms hängt.
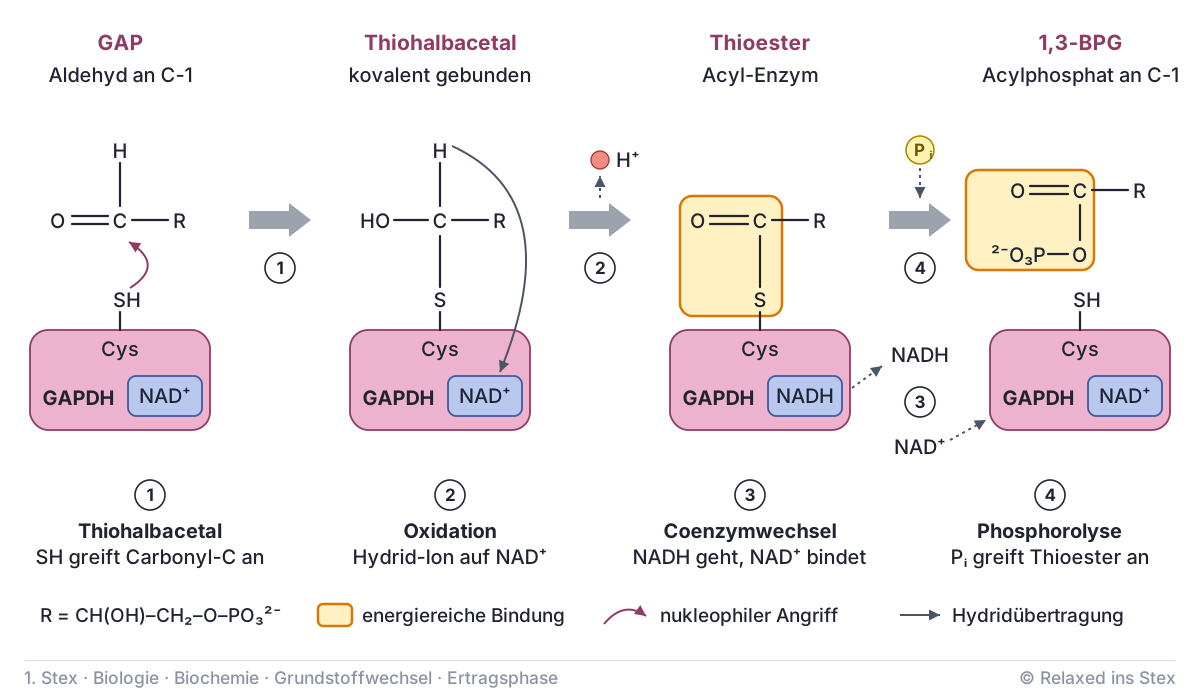
In 1,3-BPG ist die Carboxylgruppe an C-1 mit Phosphorsäure verknüpft. Dieses Acylphosphat ist ein gemischtes Säureanhydrid aus Carbonsäure und Phosphorsäure. Es hat ein hohes Phosphorylgruppen-Übertragungspotential.
Verbindungen, deren Phosphatgruppe bei der Hydrolyse mehr freie Enthalpie liefert als die endständige Phosphatgruppe von ATP (etwa −30,5 kJ/mol). Dazu gehören Acylphosphate wie 1,3-BPG (etwa −49 kJ/mol) und Enolphosphate wie Phosphoenolpyruvat (etwa −62 kJ/mol). Sie können ihre Phosphatgruppe deshalb auf ADP übertragen.
Wird im Examen gerne gefragt: Die GAPDH-Reaktion ist der oxidative Schritt der Glykolyse, liefert aber selbst kein ATP. Sie leitet die Substratkettenphosphorylierung nur ein. Anders als die Aldolase spaltet sie keine Kohlenstoffkette, und zum Citratzyklus gehört sie nicht.
Phosphoglyceratkinase
Die Phosphoglyceratkinase überträgt die energiereiche Acylphosphatgruppe von 1,3-BPG auf ADP. Es entstehen 3-Phosphoglycerat (3-PG) und ATP:
\[\text{1,3-Bisphosphoglycerat} + \ce{ADP} \rightleftharpoons \text{3-Phosphoglycerat} + \ce{ATP}\]
Das ist die erste Substratkettenphosphorylierung der Glykolyse.
ATP-Bildung, bei der ein Enzym eine Phosphatgruppe direkt von einem energiereichen Substrat auf ADP überträgt. Anders als bei der oxidativen Phosphorylierung braucht sie keinen Protonengradienten und keine Membran.
Die Kinase ist nach der Rückreaktion benannt, in der sie 3-PG mit ATP phosphoryliert. In der Glykolyse läuft sie in Richtung ATP. Pro Glucose entstehen hier zwei ATP, denn beide Triosen durchlaufen den Weg. Damit ist die Investition der Vorbereitungsphase schon zurückgezahlt.
An C-1 von 3-PG sitzt nun eine freie Carboxylatgruppe. Die Phosphatgruppe an C-3 bleibt erhalten. Ein 1,2,3-Trisphosphoglycerat kommt in der Glykolyse nicht vor.
Mutase und Enolase
3-PG kann seine Phosphatgruppe nicht auf ADP übertragen. Ein einfacher Phosphorsäureester ist dafür zu energiearm. Die nächsten zwei Schritte formen das Molekül so um, dass die Phosphatgruppe energiereich wird. ATP entsteht dabei noch nicht.
- Phosphoglycerat-Mutase: verschiebt die Phosphatgruppe reversibel von C-3 nach C-2. Es entsteht 2-Phosphoglycerat (2-PG).
- Enolase: spaltet aus 2-PG Wasser ab. Durch diese Dehydratisierung entsteht der Enolester Phosphoenolpyruvat (PEP).
\[\text{2-Phosphoglycerat} \rightleftharpoons \text{Phosphoenolpyruvat} + \ce{H2O}\]
3-PG wird hier nur umgelagert. Eine Reduktion oder eine weitere Phosphorylierung findet nicht statt. Auch 2-PG gibt sein Phosphat nicht direkt an ADP ab. PEP bildet allein die Enolase, nicht die Aldolase der Vorbereitungsphase.
In PEP hält die Phosphatgruppe das Molekül in der instabilen Enolform fest. Man kann sich das wie eine gespannte Feder vorstellen: Fällt die Phosphatgruppe weg, schnappt das Enol in die stabile Ketoform.
Pyruvatkinase
Die Pyruvatkinase überträgt die Phosphatgruppe von PEP auf ADP. Das ist die zweite Substratkettenphosphorylierung:
\[\text{Phosphoenolpyruvat} + \ce{ADP} \longrightarrow \text{Pyruvat} + \ce{ATP}\]
Zunächst entsteht Enolpyruvat. Es tautomerisiert spontan zum stabilen Pyruvat in der Ketoform. Diese Tautomerisierung setzt so viel freie Enthalpie frei, dass die Reaktion unter physiologischen Bedingungen irreversibel ist. Pro Glucose bildet die Pyruvatkinase zwei ATP.
Besonders prüfungsrelevant ist dieser Schritt mit drei Eigenschaften: Er ist ADP-abhängig, enzymkatalysiert und nicht umkehrbar. Die glykolytische Richtung führt direkt von PEP zu Pyruvat. Erst die Gluconeogenese muss den Schritt umgehen und nutzt dafür den Umweg über Oxalacetat.
Intermediate in Reihenfolge
Die phosphorylierten Zwischenprodukte folgen in fester Reihenfolge aufeinander:
Fructose-6-phosphat → Fructose-1,6-bisphosphat → Glycerinaldehyd-3-phosphat → 1,3-Bisphosphoglycerat → 3-Phosphoglycerat → 2-Phosphoglycerat → Phosphoenolpyruvat → Pyruvat
Die C3-Intermediate unterscheiden sich nur an C-1 und C-2. Wer diese Positionen liest, ordnet jede Fischer-artige Formel sicher zu (P steht für die Phosphatgruppe):
| Intermediat | C-1 | C-2 | C-3 | gebildet von |
|---|---|---|---|---|
| GAP | Aldehyd | CH–OH | \(\ce{CH2}\)–O–P | Aldolase, Triosephosphat-Isomerase |
| 1,3-BPG | Acylphosphat | CH–OH | \(\ce{CH2}\)–O–P | GAPDH |
| 3-PG | Carboxylat | CH–OH | \(\ce{CH2}\)–O–P | Phosphoglyceratkinase |
| 2-PG | Carboxylat | CH–O–P | \(\ce{CH2OH}\) | Mutase |
| PEP | Carboxylat | C–O–P mit Doppelbindung | \(\ce{=CH2}\) | Enolase |
| Pyruvat | Carboxylat | Ketogruppe | \(\ce{CH3}\) | Pyruvatkinase |
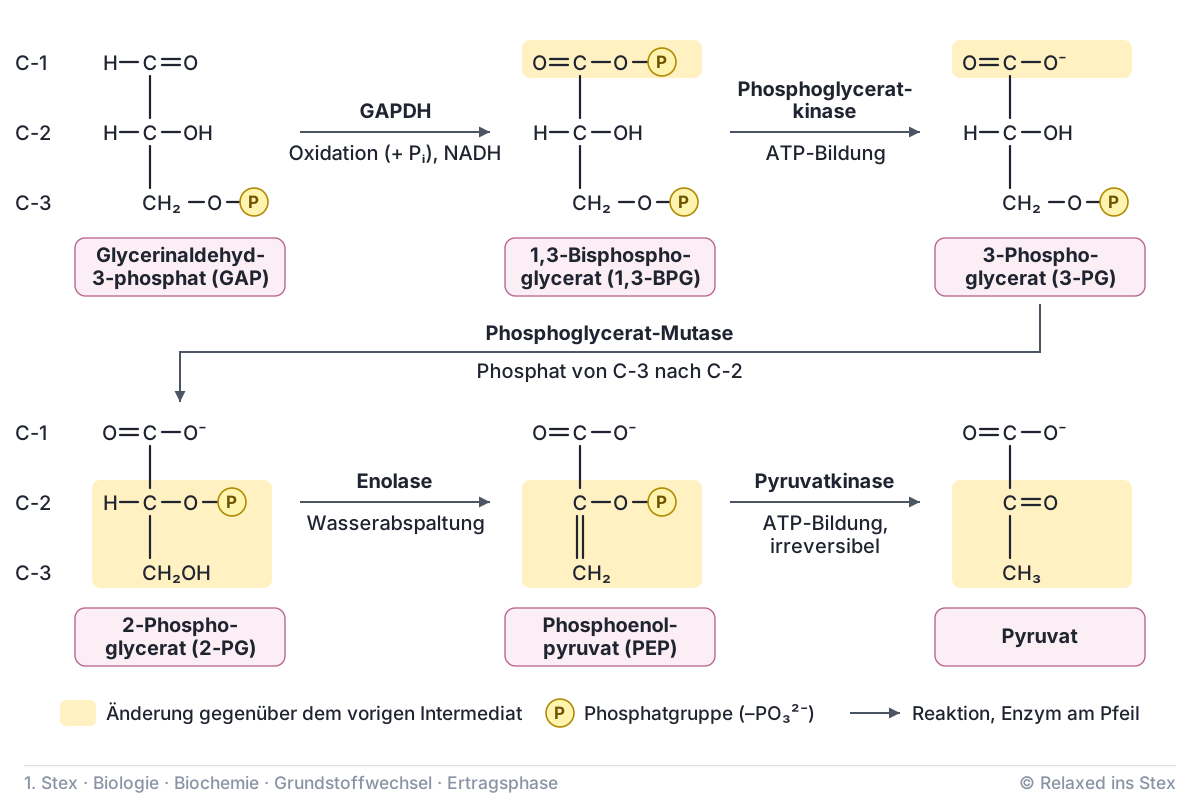
C-1 wird schrittweise oxidiert: Aldehyd, Acylphosphat, Carboxylat. Die Phosphatgruppe an C-3 wandert erst nach C-2 und wird von dort auf ADP übertragen.
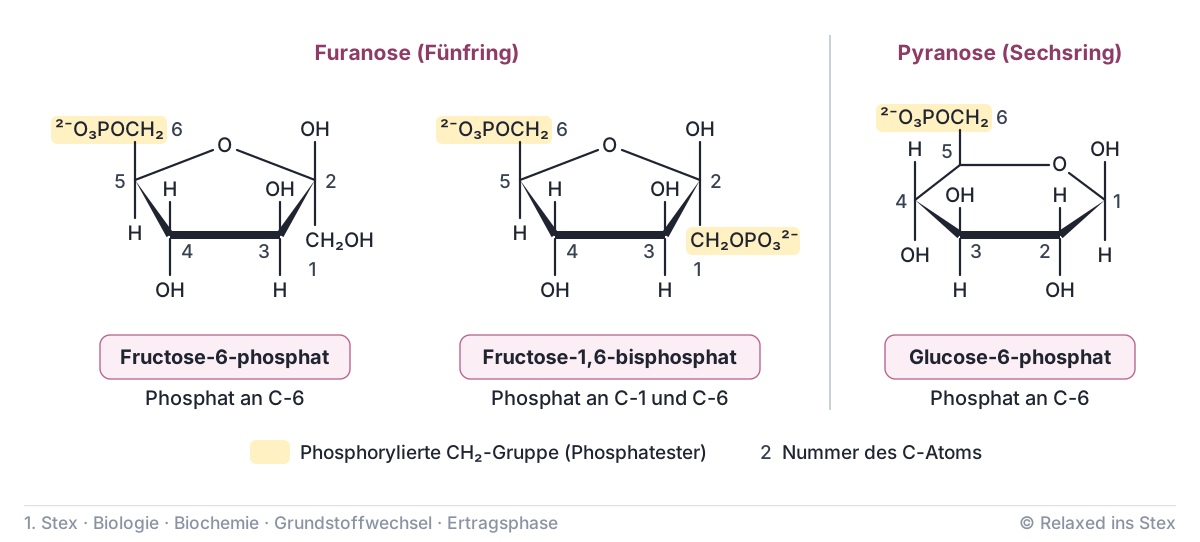
Die Hexosephosphate vor GAP sind meist in Haworth-Projektion gezeichnet. Fructose-6-phosphat und Fructose-1,6-bisphosphat erscheinen als Fünfring (Furanose). Ihre eine bzw. zwei Phosphatgruppen hängen an den \(\ce{CH2}\)-Gruppen. Glucose-6-phosphat ist dagegen ein Sechsring (Pyranose) mit Phosphat an C-6.
Energiebilanz und Coenzyme
Die Bilanz ergibt sich aus Investition und Ertrag. Bis zum Fructose-1,6-bisphosphat verbrauchen zwei ATP-abhängige Kinasen zusammen 2 ATP. Ab GAP läuft jeder Schritt doppelt, weil aus einer Glucose zwei Triosephosphate werden. Die beiden Substratkettenphosphorylierungen bilden daher zusammen 4 ATP aus ADP und Phosphat.
| Schritt | Enzym | ATP pro Glucose |
|---|---|---|
| Glucose → Glucose-6-phosphat | Hexokinase | −1 |
| Fructose-6-phosphat → Fructose-1,6-bisphosphat | Phosphofructokinase | −1 |
| 1,3-BPG → 3-PG | Phosphoglyceratkinase | +2 |
| PEP → Pyruvat | Pyruvatkinase | +2 |
| Summe | netto +2 |
Dazu kommen 2 \(\ce{NADH + H+}\) aus der GAPDH-Reaktion. Die Gesamtgleichung lautet:
\[\ce{Glucose + 2 NAD+ + 2 ADP + 2 P_i -> 2 Pyruvat + 2 NADH + 2 H+ + 2 ATP + 2 H2O}\]
Examensklassiker: Pro Glucose liefert die Glykolyse netto 2 ATP, 2 \(\ce{NADH + H+}\) und 2 Pyruvat. Unterscheide brutto und netto: 4 ATP werden gebildet, 2 vorher investiert, netto sind es also 2 mol und nicht 1 mol ATP pro mol Glucose.
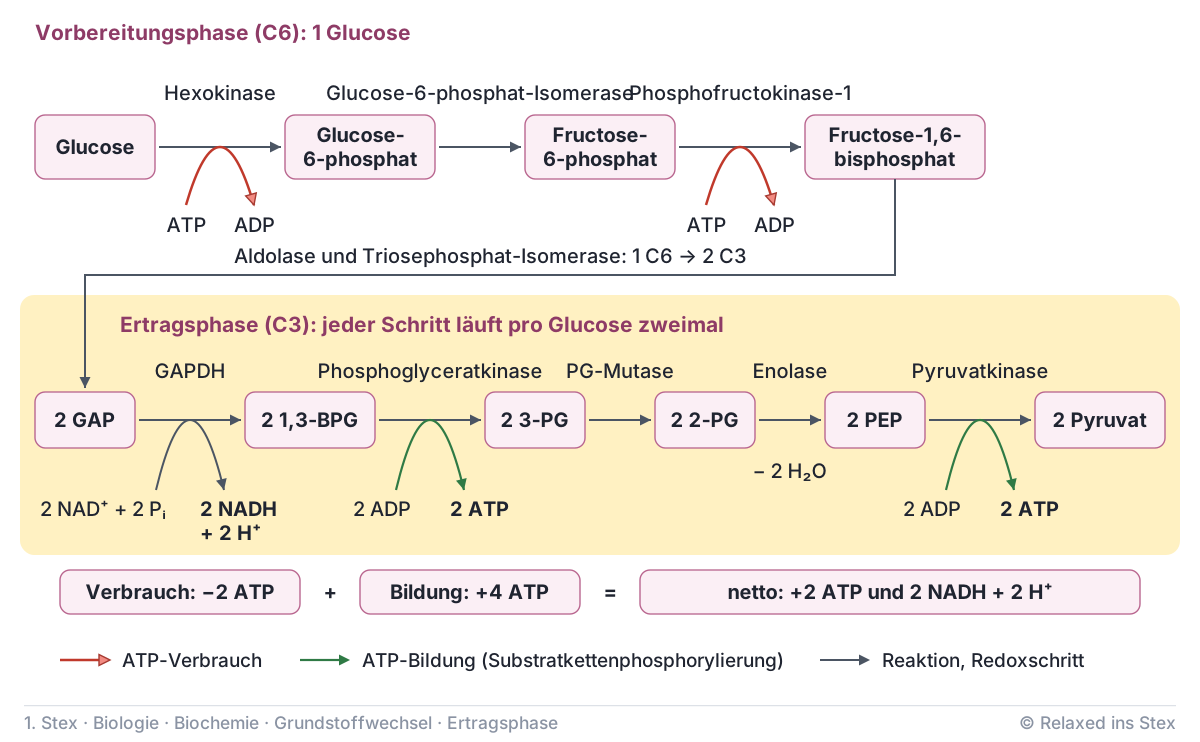
Die frei werdende Energie speichert die Zelle teils als ATP, teils in Form von NADH. Der Wasserstoff aus der Oxidation geht auf \(\ce{NAD+}\) über, nie auf ATP. ATP speichert Energie in seinen Phosphorsäureanhydridbindungen. Das NADH wird unter aeroben Bedingungen in der Atmungskette reoxidiert. Das dabei gebildete ATP zählt nicht zur Glykolysebilanz.
Coenzyme
Das einzige Redox-Coenzym der Glykolyse ist \(\ce{NAD+}\). Es dient der GAPDH als Cosubstrat, der einzigen Oxidoreduktase des Wegs, und wird zu \(\ce{NADH + H+}\) reduziert. Die folgenden Coenzyme sind an der Glykolyse unbeteiligt und arbeiten in anderen Wegen:
| Coenzym | Wo es stattdessen arbeitet |
|---|---|
| \(\ce{NADP+}\) / \(\ce{NADPH}\) | Pentosephosphatweg |
| FAD / \(\ce{FADH2}\) | Succinatdehydrogenase, β-Oxidation |
| Cytochrome | Atmungskette |
| Biotin | Carboxylierungen wie die Pyruvatcarboxylase |
| GTP | Citratzyklus |
GTP tritt in der Glykolyse also weder als energiereiches Zwischenprodukt noch als Cosubstrat einer Transferase auf. Alle Kinasen des Wegs arbeiten mit ATP bzw. ADP.
Quiz
Aussage 1
Die Enolase verschiebt die Phosphatgruppe von C-3 nach C-2 des Phosphoglycerats.
Die Umlagerung zu 2-Phosphoglycerat katalysiert die Phosphoglycerat-Mutase. Die Enolase spaltet anschließend Wasser ab und bildet Phosphoenolpyruvat.
Aussage 2
1,3-Bisphosphoglycerat enthält an C-1 ein gemischtes Anhydrid aus Carbonsäure und Phosphorsäure mit hohem Übertragungspotential.
Das Acylphosphat an C-1 ist energiereicher als die endständige Phosphatgruppe von ATP und kann deshalb auf ADP übertragen werden.
Aussage 3
Die Glykolyse liefert netto 2 mol ATP pro mol Glucose, weil 4 ATP gebildet und 2 ATP verbraucht werden.
Hexokinase und Phosphofructokinase verbrauchen je ein ATP, Phosphoglyceratkinase und Pyruvatkinase bilden je zwei ATP pro Glucose.
Aussage 4
Die Phosphoglyceratkinase bildet aus 1,3-Bisphosphoglycerat und ADP das 3-Phosphoglycerat und ATP.
Das ist die erste Substratkettenphosphorylierung der Glykolyse.
Aussage 5
Bei der Oxidation in der Glykolyse wird der Wasserstoff auf \(\ce{NADP+}\) übertragen.
Akzeptor ist \(\ce{NAD+}\), das zu \(\ce{NADH + H+}\) reduziert wird. \(\ce{NADPH}\) liefert der Pentosephosphatweg.
Aussage 6
Die Umsetzung von Phosphoenolpyruvat zu Pyruvat ist unter physiologischen Bedingungen irreversibel, weil das entstehende Enolpyruvat zur Ketoform tautomerisiert.
Die Tautomerisierung zum Pyruvat setzt viel freie Enthalpie frei und macht den Pyruvatkinase-Schritt praktisch unumkehrbar.
Aussage 7
Bei der Oxidation von Glycerinaldehyd-3-phosphat durch die GAPDH entsteht direkt ein Molekül ATP.
Die GAPDH bildet 1,3-Bisphosphoglycerat und \(\ce{NADH + H+}\). ATP entsteht erst im folgenden Schritt durch die Phosphoglyceratkinase.
Aussage 8
In der Glykolyse tritt 2-Phosphoglycerat vor 3-Phosphoglycerat auf.
Die Reihenfolge lautet 1,3-Bisphosphoglycerat → 3-Phosphoglycerat → 2-Phosphoglycerat → Phosphoenolpyruvat.
Fehler entdeckt oder eine Idee? Wir verbessern die Inhalte laufend. Melde es uns gerne über dieses Formular ❤️
Teile der Inhalte wurden mithilfe von KI-Systemen erstellt und werden fortlaufend redaktionell geprüft. Trotz Sorgfalt können Fehler enthalten sein. Wichtige Informationen bitte anhand offizieller Quellen prüfen. Relaxed ins Stex ist ein unabhängiges Angebot und steht in keiner Kooperation mit dem IMPP. Das Angebot ist weder vom IMPP autorisiert noch mit diesem verbunden.