Prinzip der Replikation und DNA-Polymerase
Wie die DNA semikonservativ verdoppelt wird, welche Nucleotide die DNA-Polymerase in welcher Richtung verknüpft und wie sie dabei Fehler korrigiert.
Das Wichtigste in Kürze
- Die Replikation ist die identische Verdopplung der DNA durch Synthese an einer DNA-Matrize mittels komplementärer Basenpaarung, bei Eukaryoten in der S-Phase im Zellkern.
- Die Replikation ist semikonservativ: Beide Elternstränge dienen als Matrize, jede Tochter-DNA enthält einen alten und einen neuen Strang (Beleg: Meselson-Stahl-Experiment).
- Substrate sind dNTPs (dATP, dGTP, dCTP, dTTP), die unter Abspaltung von Pyrophosphat eingebaut werden; dGDP und dUTP sind keine regulären Substrate, NTPs dienen nur für den RNA-Primer.
- Die Polymerase verlängert nur am 3’-OH-Ende, alle neuen Stränge wachsen 5’→3’, die Matrize wird 3’→5’ abgelesen.
- DNA-Polymerasen sind Proteine mit Proofreading durch eine 3’→5’-Exonuclease, die falsch eingebaute Nucleotide am 3’-Ende entfernt.
Worum es geht
Vor jeder Zellteilung kopiert die Zelle ihr gesamtes Erbgut, und zwar nahezu fehlerfrei. Das Prinzip dieser Kopie und das Enzym dahinter sind Grundwissen der Genetik. Pharmazeutisch zählt es, weil Virustatika wie Aciclovir und viele Zytostatika genau an der DNA-Synthese angreifen.
Was Replikation ist
Die Replikation ist die identische Verdopplung eines DNA-Moleküls. Dabei entsteht neue DNA an vorhandener DNA als Vorlage. Am Ende tragen zwei Moleküle exakt dieselbe Desoxyribonucleotidsequenz wie das Ausgangsmolekül.
Die Matrize ist der Einzelstrang, der bei der Synthese abgelesen wird. Seine Basenfolge legt über die Basenpaarung fest, welches Nucleotid gegenüber eingebaut wird.
Eukaryotische Zellen replizieren ihre chromosomale DNA in der S-Phase der Interphase, also vor der Mitose. Mehr dazu steht beim Zellzyklus. Ort ist der Zellkern, nicht das Cytosol. Mitochondrien und Chloroplasten verdoppeln ihre eigene DNA in ihrem Inneren.
Ausgangslage ist die DNA-Doppelhelix. Ihre beiden Stränge laufen antiparallel: Der eine verläuft von 5’ nach 3’, der Gegenstrang von 3’ nach 5’. Adenin paart mit Thymin, Guanin mit Cytosin. Diese Antiparallelität bestimmt später die Syntheserichtung.
Semikonservatives Prinzip
Weil A nur mit T und G nur mit C paart, enthält jeder Strang die vollständige Information für seinen Partner. Die Doppelhelix wird daher geöffnet. An jedem Einzelstrang entsteht dann durch komplementäre Basenpaarung ein neuer Strang. Beide Elternstränge dienen als Matrize, beide werden also repliziert.
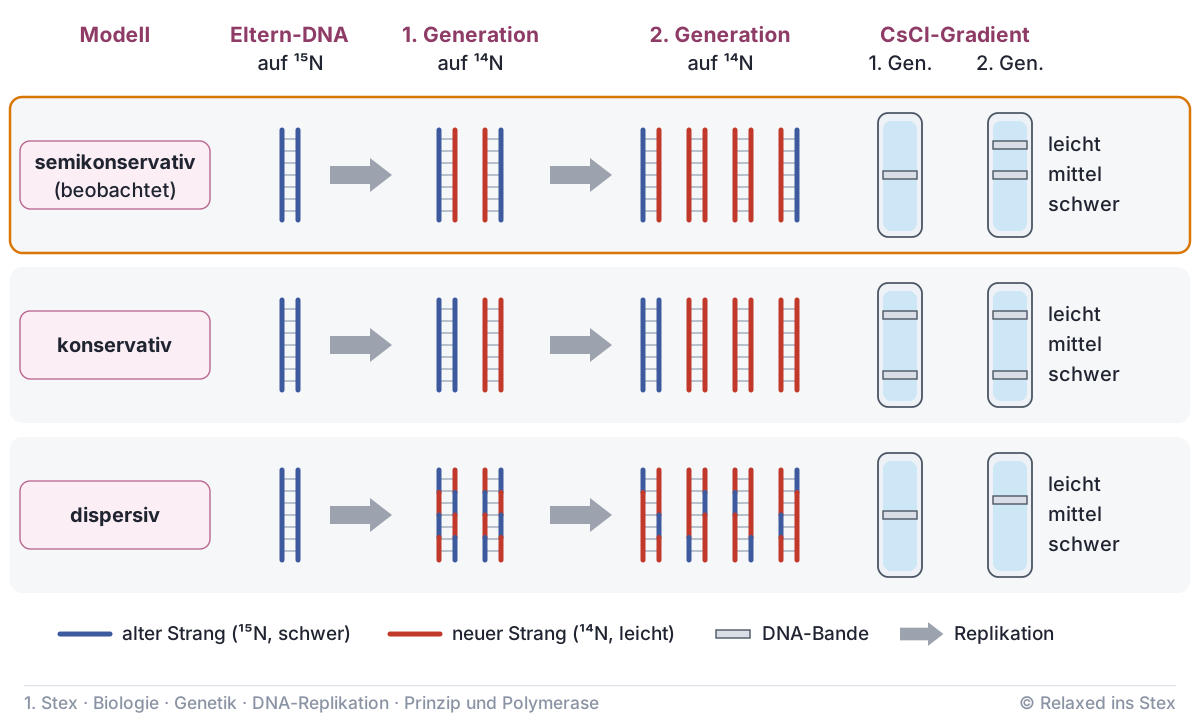
Jedes Tochtermolekül besteht danach aus einem alten und einem neuen Strang. Dieses Prinzip heißt semikonservativ: Eine Hälfte des Elternmoleküls bleibt in jeder Tochter erhalten. Man kann sich einen Reißverschluss vorstellen, dessen beide Hälften je eine neue Gegenhälfte bekommen. Das gilt für Prokaryoten ebenso wie für die DNA der Eukaryoten.
Den Beweis lieferten Meselson und Stahl 1958. Sie zogen Escherichia coli zunächst in Medium mit schwerem Stickstoff \(^{15}\mathrm{N}\) an. Dann überführten sie die Bakterien in Medium mit \(^{14}\mathrm{N}\). Im Cäsiumchlorid-Dichtegradienten zeigte die DNA nach einer Generation eine mittlere Bande. Das schließt die konservative Verdopplung aus. Nach zwei Generationen erschienen eine mittlere und eine leichte Bande, was die dispersive Verdopplung widerlegt.
Ein Stopcodon hat mit dem Ende der Replikation nichts zu tun. Es ist ein Basentriplett der mRNA und beendet die Translation am Ribosom. Die Replikation endet, wenn die DNA vollständig kopiert ist und die Replikationsgabeln aufeinandertreffen.
Substrate der DNA-Synthese
Die Bausteine der neuen DNA sind Desoxyribonucleosidtriphosphate, kurz dNTPs. Jedes besteht aus einer Base, der 2’-Desoxyribose und drei Phosphatgruppen namens α, β und γ. Die vier Substrate sind dATP, dGTP, dCTP und dTTP. dCTP heißt ausgeschrieben 2’-Desoxycytidintriphosphat.
Beim Einbau bleibt nur das α-Phosphat im Strang. Die DNA-Polymerase spaltet das endständige Pyrophosphat ab:
\[\ce{DNA_{n} + dNTP -> DNA_{n+1} + PP_i}\]
Eine Pyrophosphatase hydrolysiert das Pyrophosphat sofort zu zwei Phosphat-Ionen:
\[\ce{PP_i + H2O -> 2 P_i}\]
Diese zweite Spaltung zieht die Reaktion auf die Seite der Kettenverlängerung. Die Energie für die neue Bindung stammt also aus dem Substrat selbst.
Nicht jedes ähnliche Nucleotid ist ein Substrat. Die Tabelle ordnet die Kandidaten:
| Nucleotid | Beispiel | Rolle bei der Replikation |
|---|---|---|
| Desoxyribonucleosidtriphosphat | dATP, dGTP, dCTP, dTTP | Substrat der DNA-Polymerase |
| Desoxyribonucleosiddiphosphat | dGDP | kein Substrat, erst nach Phosphorylierung zum Triphosphat |
| Ribonucleosidtriphosphat (NTP) | ATP, GTP, CTP, UTP | Substrat der Primase für den RNA-Primer |
| Desoxyuridintriphosphat | dUTP | wird nicht regulär eingebaut |
Die Tochterstränge enthalten Thymin statt Uracil. Die Zelle hält den dUTP-Spiegel niedrig. Versehentlich eingebautes Uracil entfernt die DNA-Reparatur.
Die Replikation braucht trotzdem auch NTPs. Die Primase setzt aus ihnen kurze RNA-Primer zusammen, an die die DNA-Polymerase anknüpft. Die Okazaki-Fragmente des Folgestrangs bestehen dagegen aus Desoxyribonucleotiden. Nur ihr Primer ist anfangs aus RNA.
Wird im Examen gerne gefragt: Eingebaut werden nur Triphosphate mit Desoxyribose, und dabei wird Pyrophosphat frei. Achte darauf, dass Diphosphate wie dGDP und auch dUTP nicht als reguläre Substrate gelten und dass NTPs nur für den Primer gebraucht werden.
Syntheserichtung 5’→3’
Die DNA-Polymerase kann ein Nucleotid nur an eine freie 3’-OH-Gruppe anhängen. Diese Hydroxygruppe greift das α-Phosphat des neuen dNTP nucleophil an. So entsteht eine Phosphodiesterbindung zum 5’-Phosphat des Neuzugangs, und Pyrophosphat wird frei. Das eingebaute Nucleotid trägt nun selbst das neue freie 3’-OH-Ende.
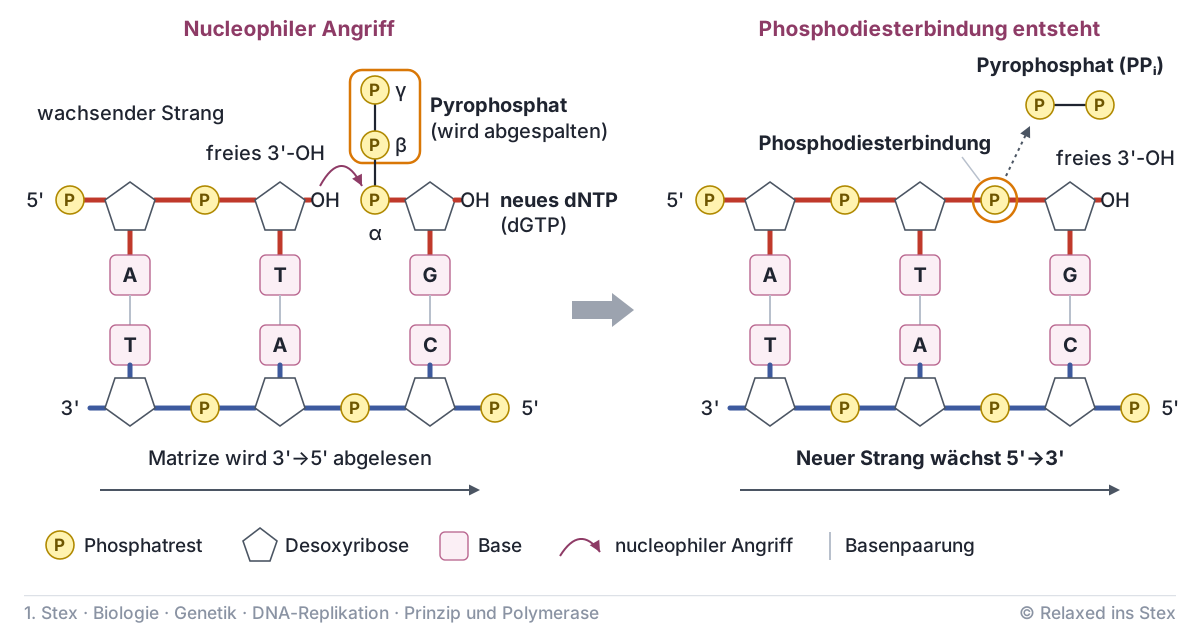
Der neue Strang wächst deshalb immer in 5’→3’-Richtung. Weil die Stränge antiparallel paaren, liest die Polymerase die Matrize von 3’ nach 5’ ab. Der neue Strang schiebt sich also am Elternstrang von dessen 3’-Ende in Richtung seines 5’-Endes vor.
Die Regel gilt für alle neu gebildeten Stränge. Beide Tochterstränge wachsen so, ebenso jedes Okazaki-Fragment. Auch die Primase verlängert den RNA-Primer an dessen 3’-OH-Ende. Eine Polymerase, die in 3’→5’-Richtung synthetisiert, gibt es nicht. Deshalb muss ein Strang an der Replikationsgabel stückweise entstehen, wie bei Leit- und Folgestrang erklärt.
Neu gebaut wird immer von 5’ nach 3’, abgelesen wird die Matrize von 3’ nach 5’. Das 3’-OH ist der einzige Ansatzpunkt für jedes neue Nucleotid.
Die Richtungsangaben werden im Examen gerne gefragt: Prüfe stets, ob vom neuen Strang (5’→3’) oder von der Matrize (3’→5’) die Rede ist. Die Bedeutung des 3’-OH zeigt auch Aciclovir. Als Triphosphat baut die virale DNA-Polymerase es ein. Ihm fehlt aber die 3’-OH-Gruppe, daher bricht die Kette danach ab.
DNA-Polymerase
DNA-Polymerasen sind die Enzyme, die DNA replizieren. Sie verknüpfen dNTPs nach Vorgabe der Matrize zu einem DNA-Strang. Einen Strang neu beginnen können sie nicht. Sie brauchen ein vorhandenes 3’-OH-Ende, das der Primer liefert.
Die Polymerase prüft jedes eingebaute Nucleotid. Passt es nicht zur Matrize, paart das 3’-Ende schlecht und die Synthese stockt. Das Ende wandert dann in ein zweites aktives Zentrum mit 3’→5’-Exonuclease-Aktivität. Dieses Proofreading oder Korrekturlesen läuft in vier Schritten ab:
- Fehleinbau: Ein falsches Nucleotid sitzt am 3’-Ende und paart nicht korrekt.
- Wechsel: Das Strangende rutscht vom Polymerase- ins Exonuclease-Zentrum.
- Abspaltung: Die Exonuclease entfernt das falsche Nucleotid vom 3’-Ende.
- Neueinbau: Das Ende kehrt zurück, und das richtige Nucleotid wird eingebaut.
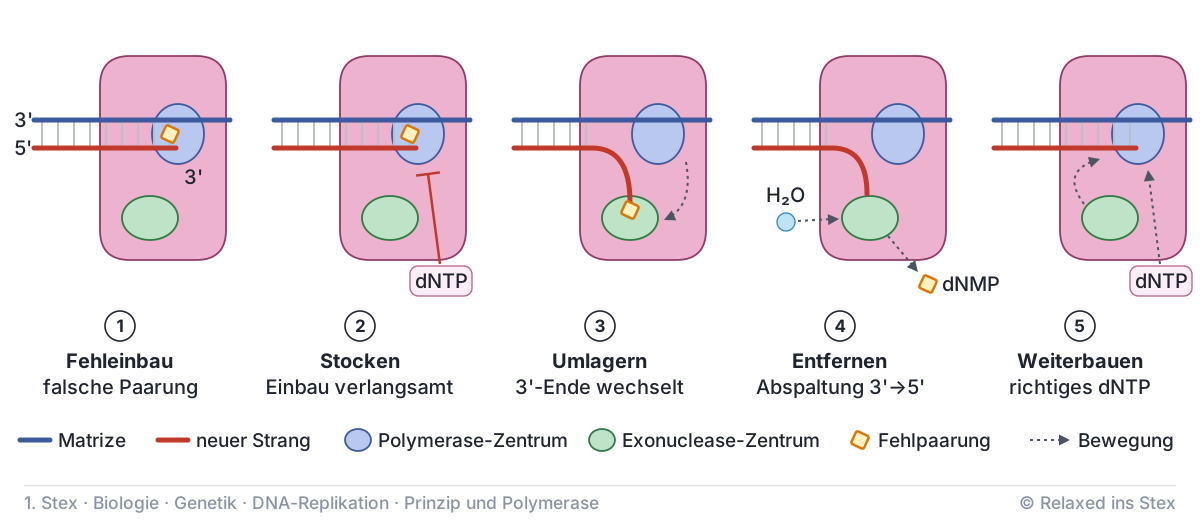
Das Korrekturlesen senkt die Fehlerrate etwa um den Faktor 100. Was danach noch falsch ist, fangen nachgeschaltete Reparatursysteme ab.
Die Polymerase synthetisiert in 5’→3’-Richtung, ihre Korrektur-Exonuclease baut dagegen in 3’→5’-Richtung ab. Beide Aktivitäten setzen am selben 3’-Ende an.
DNA-Polymerasen sind Proteine. Anders als bei Ribozymen, also katalytisch aktiver RNA, katalysiert hier kein RNA-Molekül die DNA-Synthese. Auch der Replikationsursprung ist kein Teil des Enzyms. Er ist eine DNA-Sequenz, an der die Replikation startet, während das aktive Zentrum im Polymerase-Protein liegt.
Quiz
Aussage 1
Nach einer semikonservativen Replikation besteht jedes Tochtermolekül aus einem Elternstrang und einem neu synthetisierten Strang.
Beide Elternstränge dienen als Matrize und bleiben je in einer Tochter-DNA erhalten.
Aussage 2
Beim Einbau eines dNTP in die DNA wird Pyrophosphat frei.
Nur das α-Phosphat bleibt im Strang, β- und γ-Phosphat gehen als \(\ce{PP_i}\) ab.
Aussage 3
Die DNA-Polymerase hängt neue Nucleotide an das 5’-Phosphatende des wachsenden Strangs an.
Die Kette wird am freien 3’-OH-Ende verlängert, das das α-Phosphat des neuen dNTP angreift.
Aussage 4
Okazaki-Fragmente werden im Gegensatz zum Leitstrang in 3’→5’-Richtung synthetisiert.
Alle neuen Stränge, auch Okazaki-Fragmente, wachsen in 5’→3’-Richtung.
Aussage 5
Die Korrekturlesefunktion der DNA-Polymerase beruht auf einer 3’→5’-Exonuclease-Aktivität.
Das fehlgepaarte 3’-Ende wechselt ins Exonuclease-Zentrum und wird dort abgespalten.
Aussage 6
Für die Replikation benötigt die Zelle neben dNTPs auch Ribonucleosidtriphosphate.
Die Primase baut aus NTPs die RNA-Primer, an die die DNA-Polymerase anknüpft.
Aussage 7
Die DNA-Polymerase kann dGDP direkt als Substrat in den wachsenden Strang einbauen.
Diphosphate sind kein Substrat. Eingebaut werden nur Triphosphate wie dGTP, erst nach Phosphorylierung.
Fehler entdeckt oder eine Idee? Wir verbessern die Inhalte laufend. Melde es uns gerne über dieses Formular ❤️
Teile der Inhalte wurden mithilfe von KI-Systemen erstellt und werden fortlaufend redaktionell geprüft. Trotz Sorgfalt können Fehler enthalten sein. Wichtige Informationen bitte anhand offizieller Quellen prüfen. Relaxed ins Stex ist ein unabhängiges Angebot und steht in keiner Kooperation mit dem IMPP. Das Angebot ist weder vom IMPP autorisiert noch mit diesem verbunden.