Atmungskette: Ort, Substrate und Energetik
Wo die Atmungskette sitzt, welche Stoffe sie umsetzt, warum Sauerstoff am Ende steht und woher die Energie für die ATP-Bildung kommt.
Das Wichtigste in Kürze
- Die Atmungskette ist eine membrangebundene Folge von Redoxträgern, die Elektronen von \(\ce{NADH + H+}\) und \(\ce{FADH2}\) stufenweise auf molekularen Sauerstoff überträgt (Endoxidation).
- Sie liegt bei Eukaryonten in der inneren Mitochondrienmembran, bei Bakterien in der Cytoplasmamembran. Die äußere Mitochondrienmembran und die Matrix enthalten keine Atmungskette.
- \(\ce{NADH + H+}\) wird zu \(\ce{NAD+}\) und \(\ce{FADH2}\) zu FAD oxidiert, Sauerstoff wird verbraucht und zu Wasser reduziert. \(\ce{NADPH + H+}\) ist kein Substrat der Atmungskette.
- Der terminale Elektronenakzeptor ist molekularer \(\ce{O2}\).
- Elektronen fließen von −0,32 V (NADH) nach +0,82 V (\(\ce{O2}\)). Die exergone NADH-Oxidation ist an die endergone ATP-Bildung gekoppelt, und der Elektronenfluss ist nicht zyklisch.
Worum es geht
Die Atmungskette ist die letzte Station des aeroben Energiestoffwechsels. Sie verwertet die Reduktionsäquivalente aus Glykolyse, Citratzyklus und β-Oxidation und liefert so den größten Teil des ATP einer Zelle. Wie wichtig sie ist, zeigt Cyanid: Es blockiert ihr letztes Enzym und tötet innerhalb von Minuten.
Von Reduktionsäquivalenten zu ATP
Beim Abbau von Glucose und Fettsäuren entsteht zunächst nur wenig ATP. Der größte Teil der Energie steckt in Elektronen, die Dehydrogenasen auf die Coenzyme \(\ce{NAD+}\) und FAD übertragen. So entstehen die Reduktionsäquivalente \(\ce{NADH + H+}\) und \(\ce{FADH2}\). Sie stammen aus der Glykolyse, der oxidativen Decarboxylierung von Pyruvat, dem Citratzyklus und der β-Oxidation.
Der Wasserstoff, den die Zelle bei der Glucoseoxidation abspaltet, gelangt also nicht unmittelbar zum Sauerstoff. Er wird erst von \(\ce{NAD+}\) und FAD aufgenommen. Erst danach gibt die Atmungskette ihn schrittweise an \(\ce{O2}\) weiter. Jede vollständige aerobe Oxidation von Glucose zu \(\ce{CO2}\) und \(\ce{H2O}\) durchläuft deshalb die Atmungskette.
Die Atmungskette ist eine membrangebundene Folge von Redoxträgern. Sie überträgt Elektronen von \(\ce{NADH + H+}\) und \(\ce{FADH2}\) stufenweise auf molekularen Sauerstoff. Den Gesamtvorgang nennt man auch Endoxidation.
Die Energiegewinnung läuft in drei gekoppelten Schritten ab:
- Oxidation: Die Reduktionsäquivalente geben ihre Elektronen an die Kette ab.
- Elektronentransport: Die Elektronen wandern über mehrere Komplexe und Überträger zum \(\ce{O2}\). Dabei werden Protonen über die Membran gepumpt.
- Oxidative Phosphorylierung: Die ATP-Synthase nutzt den Rückstrom der Protonen und bildet ATP aus ADP und Phosphat.
Wie die Komplexe im Einzelnen arbeiten und wie der Protonengradient entsteht, erklären die folgenden Einheiten. Hier geht es um Ort, Bilanz und Energetik.
Membranbindung
Die Atmungskette ist immer an eine Biomembran gebunden. Das hat einen einfachen Grund: Ein Protonengradient braucht zwei getrennte Räume. Eine gelöste Enzymmischung könnte keinen Gradienten aufbauen. Ähnlich ist auch die osmotische Regulation einer Zelle an Membranen gebunden, weil auch sie getrennte Kompartimente voraussetzt.
Bei Eukaryonten sitzen die Komplexe in der inneren Mitochondrienmembran. Diese Membran ist zu Cristae gefaltet und bietet so viel Fläche. Die äußere Mitochondrienmembran enthält keine Atmungskette. Sie ist durch Porine für kleine Moleküle durchlässig und taugt daher nicht als Barriere für Protonen. Zum Bau der Mitochondrien siehe die eigene Einheit.
Die Matrix ist der Ort des Citratzyklus. Dessen Enzyme liegen dort gelöst vor. Die Atmungskette dagegen besteht aus großen, in die Membran eingebetteten Proteinkomplexen. Man kann sich die Matrix als Werkstatt vorstellen, die Brennstoff liefert, und die innere Membran als Kraftwerk, das ihn verbrennt.
Bakterien besitzen keine Mitochondrien. Bei ihnen liegt die Atmungskette in der Cytoplasmamembran, und dort läuft auch ihre Endoxidation ab. Die Komplexe aerober Organismen sitzen also nicht immer in Mitochondrien. Diese Lage ist besonders prüfungsrelevant: Innere Mitochondrienmembran bei Eukaryonten und Cytoplasmamembran bei Prokaryonten solltest du sicher zuordnen können.
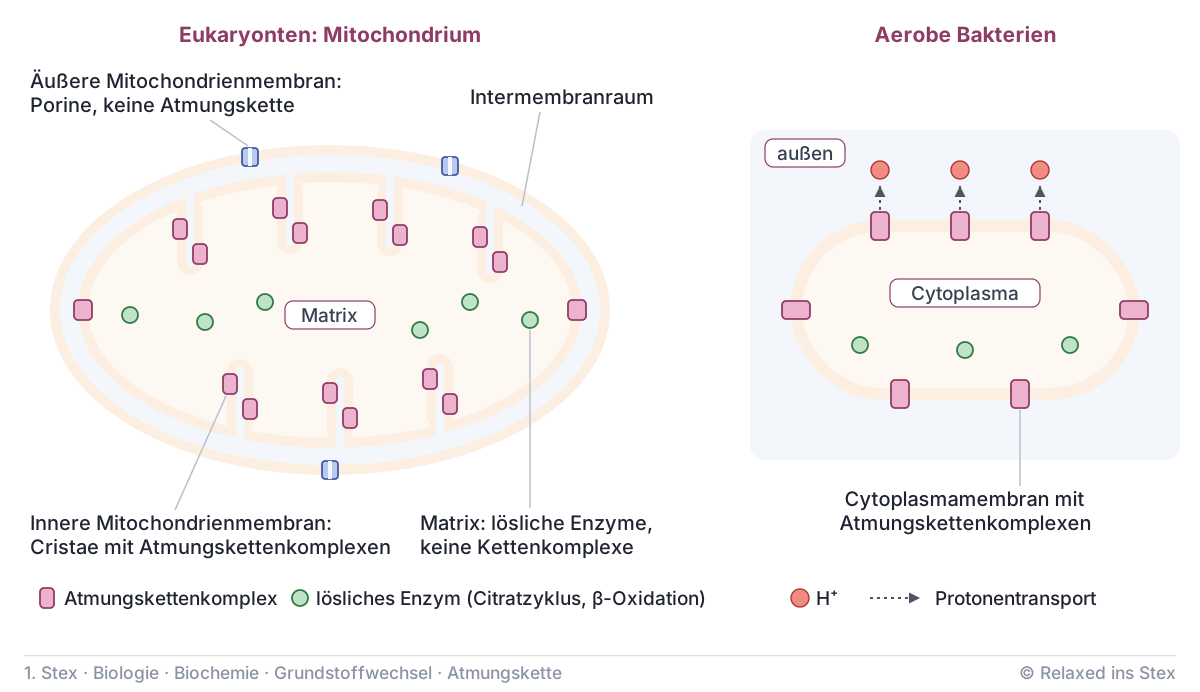
In der eukaryontischen Zelle ist die Cytochrom-c-Oxidase, der letzte Komplex der Kette, ein charakteristisches Enzym der Mitochondrien. Sie dient deshalb als Markerenzym, wenn man Mitochondrien aus Zellhomogenaten anreichert.
Substrate und Produkte
Die Atmungskette verbraucht Reduktionsäquivalente. Sie oxidiert \(\ce{NADH + H+}\) zu \(\ce{NAD+}\) und \(\ce{FADH2}\) zu FAD. Dabei überträgt sie Wasserstoff, also Elektronen und Protonen, auf Sauerstoff. Die Teilbilanzen lauten:
\[\ce{NADH + H+ + 1/2 O2 -> NAD+ + H2O}\]
\[\ce{FADH2 + 1/2 O2 -> FAD + H2O}\]
Sauerstoff wird also verbraucht und zu Wasser reduziert. Wasser ist ein Produkt der Atmungskette. Das regenerierte \(\ce{NAD+}\) und FAD gehen zurück in die Abbauwege. Ohne Atmungskette käme der Citratzyklus schnell zum Stillstand, weil ihm die oxidierten Coenzyme fehlen würden.
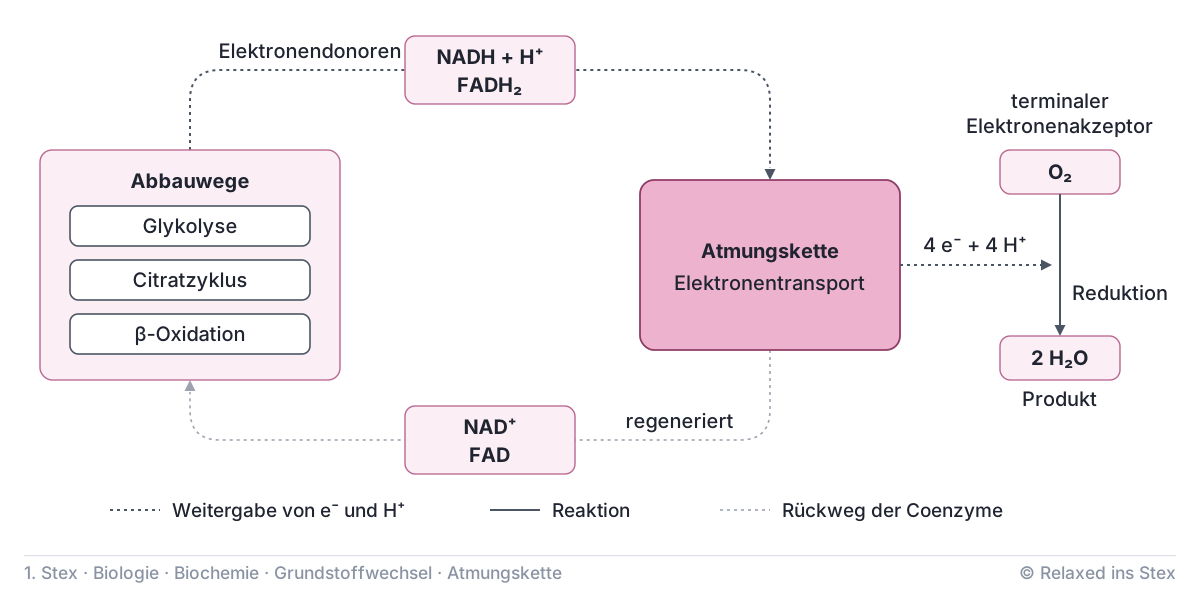
Die Rollen der beteiligten Stoffe im Überblick:
| Stoff | Rolle in der Atmungskette |
|---|---|
| \(\ce{NADH + H+}\) | Elektronendonor, wird zu \(\ce{NAD+}\) oxidiert |
| \(\ce{FADH2}\) | Elektronendonor, wird zu FAD oxidiert |
| \(\ce{O2}\) | terminaler Elektronenakzeptor, wird verbraucht |
| \(\ce{H2O}\) | Produkt der Sauerstoffreduktion |
| \(\ce{NAD+}\), FAD | Produkte, kehren in die Abbauwege zurück |
| \(\ce{NADPH + H+}\) | kein Substrat, liefert Elektronen für Biosynthesen |
\(\ce{NADPH + H+}\) hat eine andere Aufgabe. Es entsteht vor allem im Pentosephosphatweg und treibt reduktive Biosynthesen an, etwa die Fettsäuresynthese. Die Energie des Elektronentransports dient also nicht seiner Oxidation.
Der terminale Elektronenakzeptor ist das Molekül, das am Ende einer Elektronentransportkette die Elektronen endgültig aufnimmt. In der Atmungskette ist das molekularer Sauerstoff \(\ce{O2}\), der dabei zu \(\ce{H2O}\) reduziert wird.
\(\ce{NAD+}\) und FAD nehmen Elektronen zwar auf, aber am Anfang des Weges. Sie sind Coenzyme der Abbauwege. Ubichinon ist ein Zwischenträger innerhalb der Kette und gibt seine Elektronen weiter. Wasser schließlich steht als Produkt am Ende. Anders als bei der Photosynthese gibt es hier keine Elektronen ab, denn dort ist Wasser der Elektronendonor.
Wird im Examen gerne gefragt: Terminaler Elektronenakzeptor der Atmungskette ist molekularer \(\ce{O2}\). Achte darauf, ihn von den Coenzymen \(\ce{NAD+}\) und FAD, vom Zwischenträger Ubichinon und vom Produkt \(\ce{H2O}\) zu unterscheiden.
Energetik
Elektronen fließen in der Atmungskette von einem höheren zu einem niedrigeren Energieniveau. Das Maß dafür ist das Redoxpotential. Das Paar \(\ce{NAD+}\)/NADH liegt bei −0,32 V, das Paar \(\ce{O2}\)/\(\ce{H2O}\) bei +0,82 V. Elektronen wandern freiwillig zum positiveren Potential, also zum Sauerstoff.
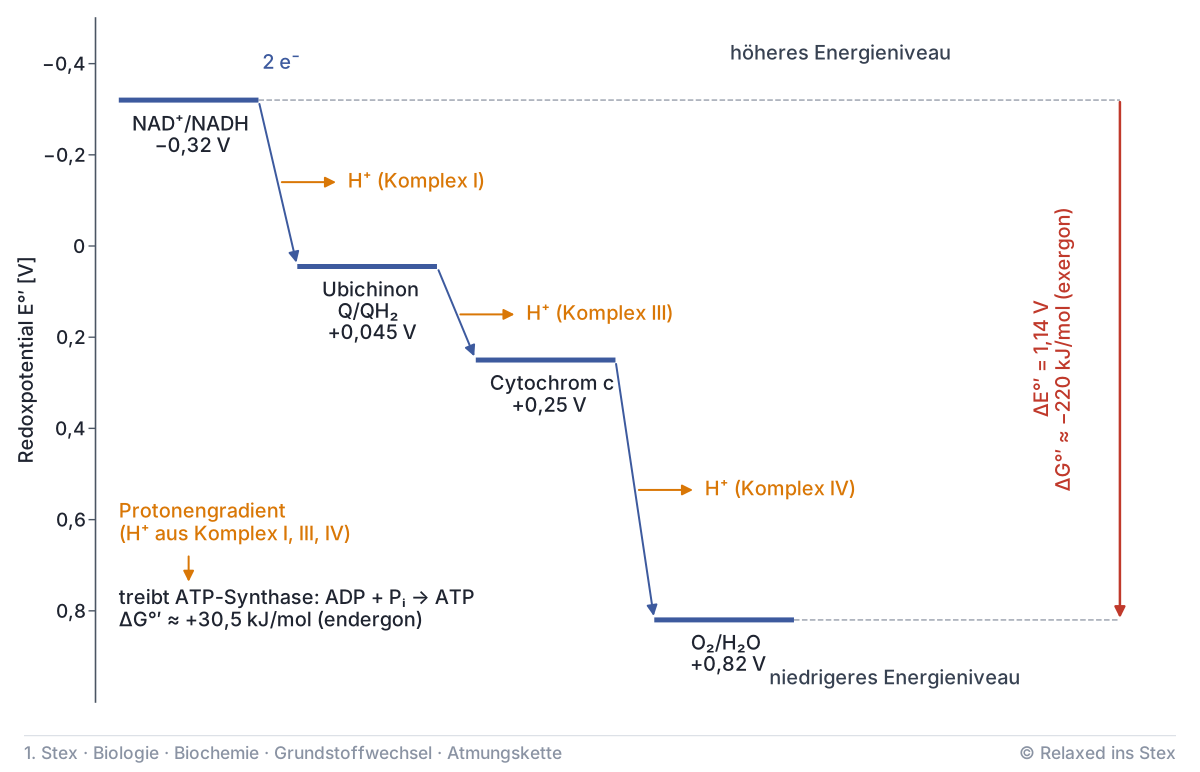
Aus der Potentialdifferenz lässt sich die freie Energie abschätzen. Mit \(n\) als Zahl der übertragenen Elektronen, \(F\) als Faraday-Konstante (96 485 C/mol) und \(\Delta E\) als Potentialdifferenz in Volt gilt:
\[\Delta G^{0\prime} = -n \cdot F \cdot \Delta E^{0\prime}\]
Für NADH ergibt sich mit \(n = 2\) und \(\Delta E = 1{,}14\ \mathrm{V}\) ein Wert von etwa −220 kJ/mol. Die Oxidation von NADH ist also stark exergon. Die Bildung von ATP aus ADP und anorganischem Phosphat ist dagegen endergon und braucht rund +30 kJ/mol.
Die Zelle koppelt beide Vorgänge. Die Energie des Elektronenflusses treibt über den Protonengradienten die ATP-Synthese an. Weil die Elektronen in vielen kleinen Stufen absteigen, geht die Energie nicht auf einmal als Wärme verloren. Man kann sich das wie eine Treppe statt eines Sprungs vorstellen.
Atmungskette: exergone NADH-Oxidation treibt endergone ATP-Bildung. Die Elektronen laufen nur bergab, von NADH zum \(\ce{O2}\).
Der Elektronenfluss ist dabei streng linear. Anders als in der Photosynthese gibt es keinen zyklischen Elektronentransport, denn ohne Licht fehlt die Energie, die Elektronen wieder auf ein höheres Niveau zu heben.
Quiz
Aussage 1
Die Enzymkomplexe der Atmungskette liegen zusammen mit den Citratzyklusenzymen gelöst in der mitochondrialen Matrix vor.
Gelöst in der Matrix liegen die Citratzyklusenzyme. Die Atmungskette ist in die innere Mitochondrienmembran eingebettet.
Aussage 2
Molekularer Sauerstoff nimmt am Ende der Atmungskette die Elektronen auf und wird dabei zu Wasser reduziert.
\(\ce{O2}\) ist der terminale Elektronenakzeptor. Seine Reduktion liefert \(\ce{H2O}\).
Aussage 3
In der Atmungskette treibt die exergone Oxidation von NADH die endergone Bildung von ATP aus ADP und Phosphat an.
Die Elektronen fließen von −0,32 V nach +0,82 V. Die frei werdende Energie wird über den Protonengradienten für die ATP-Synthese genutzt.
Aussage 4
In der Atmungskette wird Wasser verbraucht und \(\ce{NAD+}\) zu NADH reduziert.
Umgekehrt: NADH wird zu \(\ce{NAD+}\) oxidiert, Sauerstoff wird verbraucht und Wasser wird gebildet.
Aussage 5
\(\ce{NADPH + H+}\) ist das wichtigste Substrat der mitochondrialen Atmungskette.
Substrate sind \(\ce{NADH + H+}\) und \(\ce{FADH2}\). NADPH liefert Elektronen für reduktive Biosynthesen.
Aussage 6
Bei Bakterien sind die Komplexe der Atmungskette in der Cytoplasmamembran lokalisiert.
Bakterien haben keine Mitochondrien. Ihre Atmungskette und damit die Endoxidation liegen in der Cytoplasmamembran.
Aussage 7
Die Cytochrom-c-Oxidase eignet sich als Markerenzym für Mitochondrien.
Sie ist ein charakteristisches Enzym der Mitochondrien und sitzt als letzter Komplex der Kette in der inneren Membran.
Fehler entdeckt oder eine Idee? Wir verbessern die Inhalte laufend. Melde es uns gerne über dieses Formular ❤️
Teile der Inhalte wurden mithilfe von KI-Systemen erstellt und werden fortlaufend redaktionell geprüft. Trotz Sorgfalt können Fehler enthalten sein. Wichtige Informationen bitte anhand offizieller Quellen prüfen. Relaxed ins Stex ist ein unabhängiges Angebot und steht in keiner Kooperation mit dem IMPP. Das Angebot ist weder vom IMPP autorisiert noch mit diesem verbunden.