Michaelis-Konstante: Definition und Bedeutung
Die Michaelis-Konstante \(K_M\) ist die Substratkonzentration bei halbmaximaler Geschwindigkeit, ein Maß für die Affinität und eine Kenngröße jedes Enzym-Substrat-Paares.
Das Wichtigste in Kürze
- Die Michaelis-Konstante \(K_M\) ist die Substratkonzentration, bei der ein Enzym mit halbmaximaler Geschwindigkeit \(v_{max}/2\) arbeitet, Einheit mol/L.
- Zum Ablesen halbiert man zuerst \(v_{max}\), geht waagerecht zur Kurve und fällt dann das Lot auf die Substratachse.
- Ein niedriger \(K_M\) bedeutet hohe Affinität zwischen Enzym und Substrat, ein hoher \(K_M\) geringe Affinität.
- \(K_M\) ist charakteristisch für das Enzym-Substrat-Paar und unabhängig von der Enzymmenge: Mehr Enzym erhöht nur \(v_{max}\).
- Isoenzyme wie Hexokinase und Glucokinase katalysieren dieselbe Reaktion, können sich aber in \(K_M\) und Wechselzahl \(k_{cat} = v_{max}/[E]_0\) unterscheiden.
Worum es geht
Die Michaelis-Konstante \(K_M\) verrät, wie viel Substrat ein Enzym braucht, um mit halber Kraft zu arbeiten. Sie gehört zur Enzymkinetik und baut auf der Sättigungskurve auf. In der Pharmazie braucht man sie, um Enzyme zu vergleichen und später die Wirkung von Enzymhemmstoffen zu verstehen.
Definition von \(K_M\)
Misst man die Anfangsgeschwindigkeit \(v_0\) eines Enzyms bei steigender Substratkonzentration \([S]\), entsteht die hyperbolische Sättigungskurve. Sie nähert sich der Maximalgeschwindigkeit \(v_{max}\), erreicht sie aber nie ganz. Diesen Verlauf beschreibt die Michaelis-Menten-Kinetik. Sie gilt für Enzyme, die ihr Substrat erst in einem Enzym-Substrat-Komplex binden und dann umsetzen:
\[\ce{E + S <=> ES -> E + P}\]
Die zugehörige Gleichung verknüpft \(v_0\) und \([S]\) über zwei Kenngrößen des Enzyms.
\[v_0 = \frac{v_{max}\cdot [S]}{K_M + [S]}\]
| Größe | Bedeutung | Einheit |
|---|---|---|
| \(v_0\) | Anfangsgeschwindigkeit der Reaktion | µmol/(L·min) |
| \(v_{max}\) | Maximalgeschwindigkeit bei Substratsättigung | µmol/(L·min) |
| \([S]\) | Substratkonzentration | mol/L |
| \(K_M\) | Michaelis-Konstante | mol/L |
Was \(K_M\) bedeutet
Setzt man \([S] = K_M\) ein, steht im Nenner \(2K_M\). Die Geschwindigkeit beträgt dann genau \(v_{max}/2\). Daraus folgt die Definition: Die Michaelis-Konstante \(K_M\) ist die Substratkonzentration, bei der die Reaktion mit halbmaximaler Geschwindigkeit abläuft. Als Substratkonzentration hat sie die Einheit mol/L, in der Praxis meist mmol/L oder µmol/L. Die Schreibweise \(K_m\) und der Name Michaelis-Menten-Konstante meinen dieselbe Größe.
Aus der Gleichung ergeben sich drei Bereiche der Kurve:
- \([S] \ll K_M\): \(v_0 \approx \frac{v_{max}}{K_M}\cdot [S]\). Doppelte Substratkonzentration, doppelte Geschwindigkeit. Das ist der lineare Anfangsbereich mit der Steigung \(v_{max}/K_M\).
- \([S] = K_M\): Die Hälfte der aktiven Zentren ist besetzt, \(v_0 = v_{max}/2\).
- \([S] \gg K_M\): \(v_0 \approx v_{max}\). Das Enzym ist gesättigt, mehr Substrat bringt kaum Gewinn. Selbst bei \([S] = 9\,K_M\) sind erst 90 % von \(v_{max}\) erreicht.
\(K_M\) aus der Kurve ablesen
Das Ablesen von \(K_M\) aus einer Sättigungskurve wird im Examen gerne gefragt. Entscheidend ist, zuerst \(v_{max}\) zu halbieren und erst dann zur x-Achse zu gehen.
- Plateau bestimmen: Die Asymptote der Kurve liefert \(v_{max}\), hier 120 µmol/(L·min).
- Halbieren: \(v_{max}/2\) = 60 µmol/(L·min) auf der y-Achse markieren.
- Zur Kurve: Von diesem Wert waagerecht bis zur Kurve gehen.
- Lot fällen: Senkrecht hinab zur Substratachse. Der Schnittpunkt ist \(K_M\) = 0,8 mmol/L.
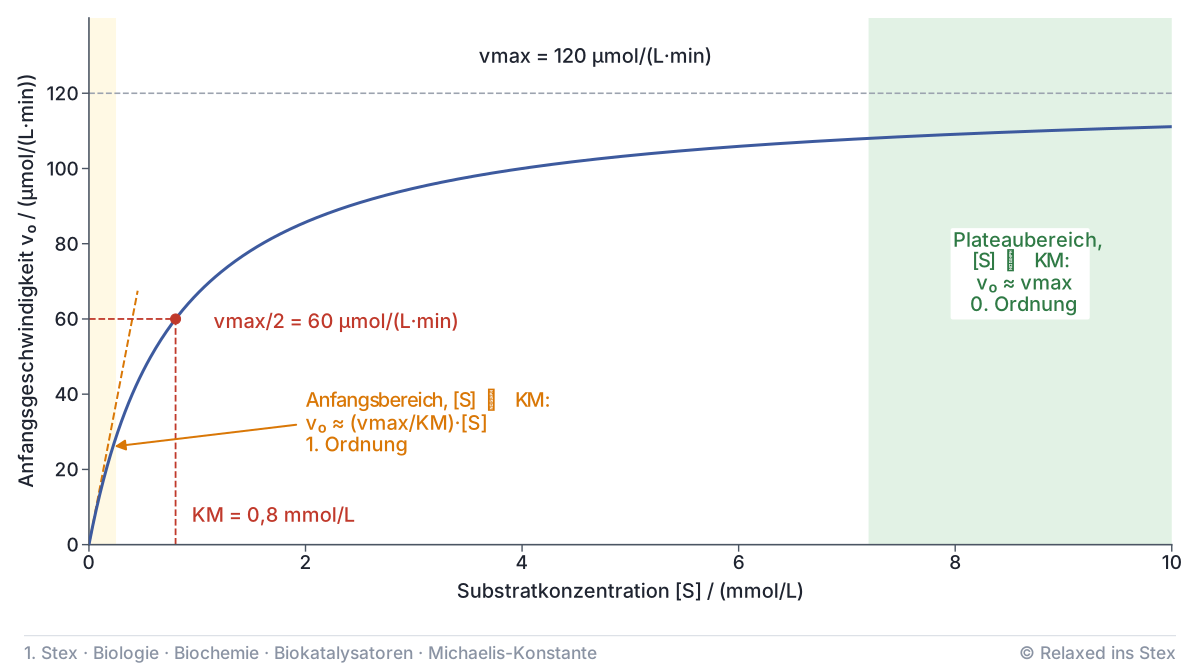
Mit beiden Werten lässt sich jede andere Geschwindigkeit berechnen. Bei \([S]\) = 2,4 mmol/L, also dem Dreifachen von \(K_M\), gilt: \(v_0\) = 120 · 2,4 / (0,8 + 2,4) µmol/(L·min) = 90 µmol/(L·min). Das sind drei Viertel von \(v_{max}\).
\(K_M\) gehört immer zu \(v_{max}/2\), nie zu \(v_{max}\). Eine Substratkonzentration „bei \(v_{max}\)“ gibt es nicht, weil sich die Kurve dem Plateau nur annähert. Auch der höchste gemessene Umsatz liefert nur einen Näherungswert für \(v_{max}\).
Zwei weitere Verwechslungen liegen nahe. \(K_M\) bezieht sich auf das Substrat auf der x-Achse und ist daher keine Enzymkonzentration. Auch die Steigung des Anfangsbereichs ist nicht \(K_M\), denn sie beträgt \(v_{max}/K_M\) und hat die Einheit einer Zeit hoch minus eins.
\(K_M\) als Affinitätsmaß
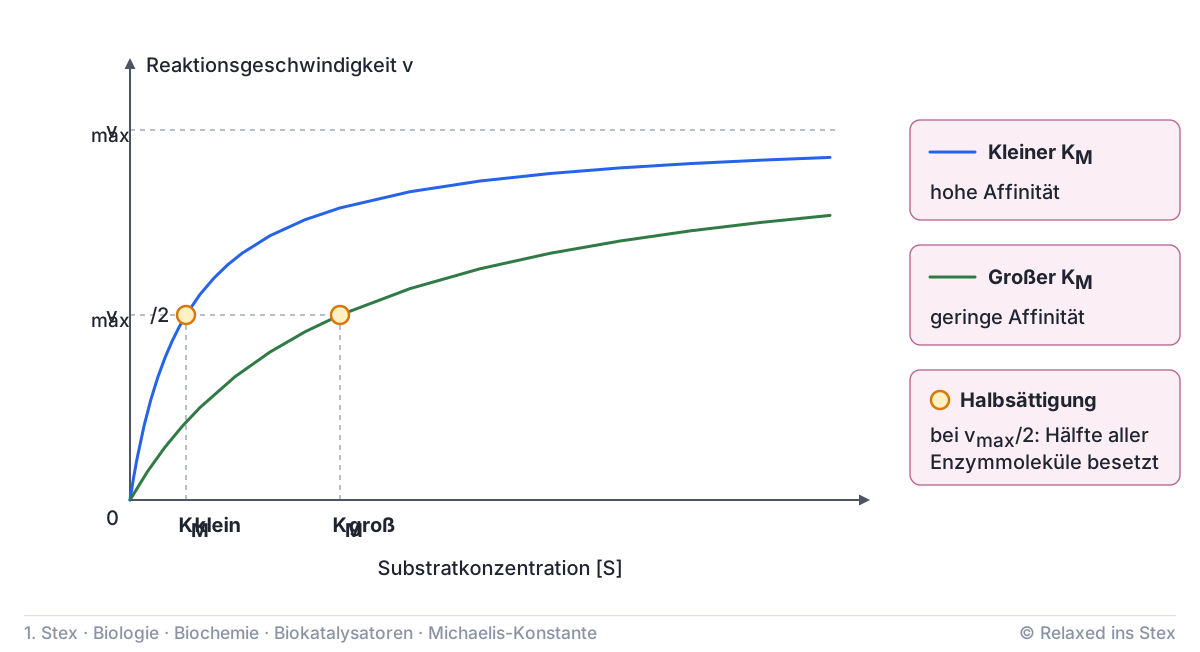
Affinität beschreibt, wie bereitwillig ein Enzym sein Substrat bindet. Ein Enzym mit hoher Affinität besetzt schon bei wenig Substrat die Hälfte seiner aktiven Zentren. Es erreicht \(v_{max}/2\) also bei kleiner Substratkonzentration. Deshalb ist \(K_M\) ein Maß für die Affinität zwischen Enzym und Substrat.
Niedriger \(K_M\), hohe Affinität. Hoher \(K_M\), geringe Affinität.
Man kann sich das wie zwei Schwämme vorstellen. Der eine saugt sich schon in feuchter Luft halb voll, der andere erst im Wasserbad. Ein Enzym mit \(K_M\) = 0,01 mmol/L arbeitet schon bei Spuren seines Substrats effizient. Ein Enzym mit \(K_M\) = 10 mmol/L braucht tausendfach mehr Substrat für denselben Sättigungsgrad.
Die Abbildung zeigt zwei Enzyme mit gleichem \(v_{max}\). Beide erreichen dasselbe Plateau. Die Kurve mit kleinem \(K_M\) steigt aber steiler an und ist früher halb gesättigt.
Vertiefung: $K_M$ und Dissoziationskonstante
Streng gilt \(K_M = (k_{-1} + k_2)/k_1\). Dabei steht \(k_1\) für die Bildung von ES, \(k_{-1}\) für den Zerfall zurück zu E und S und \(k_2\) für die Produktbildung. Ist \(k_2\) klein gegen \(k_{-1}\), entspricht \(K_M\) näherungsweise der Dissoziationskonstante des ES-Komplexes und ist dann ein reines Bindungsmaß.
\(K_M\) als Enzymkenngröße
Jedes Enzym hat für jedes seiner Substrate einen eigenen \(K_M\)-Wert. Die Größe ist also charakteristisch für das Enzym-Substrat-Paar, weil sie dessen spezifische Affinität widerspiegelt. Unter festgelegten Bedingungen wie pH und Temperatur lässt sich ein Enzym über seinen \(K_M\)-Wert charakterisieren. Dasselbe gilt für die Halbsättigungskonzentration, die genau diesen Wert meint.
Umgekehrt hilft \(K_M\) bei der Frage, welches Substrat ein Enzym umsetzt. Hexokinase phosphoryliert Glucose und Fructose, bindet Glucose aber deutlich fester. Einen gemessenen \(K_M\)-Wert vergleicht man mit den bekannten Werten möglicher Substrate. Das grenzt das umgesetzte Substrat ein.
Unabhängig von der Enzymmenge
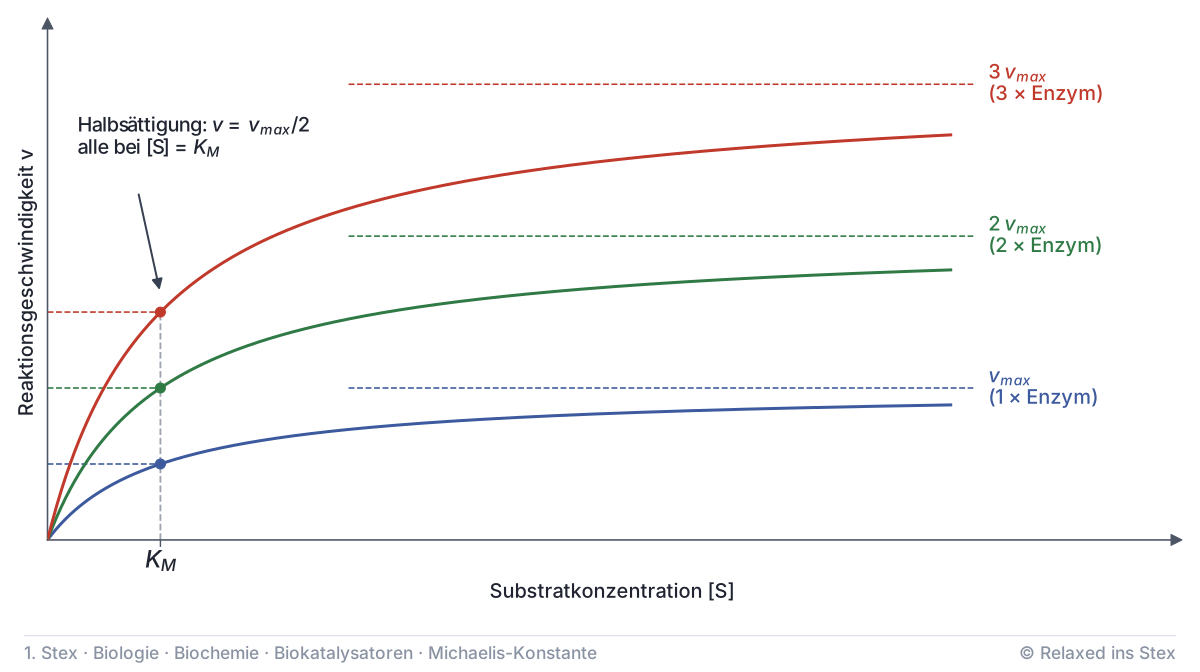
Gibt man doppelt so viel Enzym in den Ansatz, verdoppelt sich \(v_{max}\), denn es arbeiten doppelt so viele Moleküle. \(K_M\) bleibt dagegen gleich. Die Konstante beschreibt das Verhalten jedes einzelnen Enzymmoleküls gegenüber dem Substrat. Ebenso hängt die Dissoziationskonstante des ES-Komplexes nicht von der Enzymkonzentration ab, weil sie eine Gleichgewichtskonstante ist.
Isoenzyme und Wechselzahl
Isoenzyme sind verschiedene Proteine, die dieselbe Reaktion katalysieren. Sie unterscheiden sich in der Aminosäuresequenz und kommen oft in verschiedenen Geweben vor. Deshalb können sie verschiedene \(K_M\)-Werte haben. Ein Beispiel ist die Phosphorylierung von Glucose. Hexokinase in Muskel und Gehirn hat einen \(K_M\) unter 0,1 mmol/L. Bei normalem Blutzucker von etwa 5 mmol/L ist sie nahezu gesättigt. Die Glucokinase der Leber hat einen \(K_M\) von etwa 8 bis 10 mmol/L und wird erst bei hohem Blutzucker nach einer Mahlzeit richtig aktiv.
Isoenzyme können sich auch in ihrer Wechselzahl \(k_{cat}\) unterscheiden. Sie gibt an, wie viele Substratmoleküle ein Enzymmolekül bei Sättigung pro Sekunde umsetzt. Man berechnet sie als \(k_{cat} = v_{max}/[E]_0\), wobei \([E]_0\) die Gesamtkonzentration des Enzyms ist. Die Einheit ist \(\mathrm{s^{-1}}\). Katalase etwa setzt mehrere Millionen \(\ce{H2O2}\)-Moleküle pro Sekunde um. Anders als \(K_M\) beschreibt die Wechselzahl also das Tempo am Plateau und nicht die Bindung.
Was \(K_M\) nicht verrät
Strukturdaten wie Molekülmasse oder Primärstruktur lassen sich aus \(K_M\) nicht ableiten. Auch pH- und Temperaturoptimum folgen nicht aus \(K_M\). Sie stammen aus eigenen Aktivitätsmessungen bei verschiedenen pH-Werten und Temperaturen. Wie Hemmstoffe den \(K_M\)-Wert verändern, zeigt die kompetitive Hemmung.
Besonders prüfungsrelevant: \(K_M\) ist für das Enzym-Substrat-Paar charakteristisch und bleibt bei mehr Enzym konstant, nur \(v_{max}\) steigt. Achte darauf, dass Isoenzyme sich sowohl in \(K_M\) als auch in der Wechselzahl unterscheiden können.
Quiz
Aussage 1
Isoenzyme katalysieren dieselbe Reaktion, können sich aber in Michaelis-Konstante und Wechselzahl unterscheiden.
Isoenzyme sind verschiedene Proteine, etwa Hexokinase und Glucokinase, mit eigenen kinetischen Kenngrößen.
Aussage 2
Die Steigung des linearen Anfangsbereichs einer Michaelis-Menten-Kurve entspricht dem \(K_M\)-Wert.
Die Anfangssteigung beträgt \(v_{max}/K_M\). \(K_M\) liest man an der x-Achse beim Punkt halbmaximaler Geschwindigkeit ab.
Aussage 3
Ein Enzym mit \(K_M\) = 0,05 mmol/L bindet sein Substrat mit höherer Affinität als ein Enzym mit \(K_M\) = 5 mmol/L.
Je kleiner \(K_M\), desto weniger Substrat braucht das Enzym für die Halbsättigung, desto höher ist also die Affinität.
Aussage 4
Aus dem \(K_M\)-Wert eines Enzyms lässt sich sein pH-Optimum ableiten.
pH- und Temperaturoptimum ermittelt man aus eigenen Aktivitätsmessungen. \(K_M\) gibt darüber keine Auskunft.
Aussage 5
Die Michaelis-Konstante hat die Einheit einer Konzentration, zum Beispiel mmol/L.
\(K_M\) ist eine Substratkonzentration und wird daher in mol/L oder davon abgeleiteten Einheiten angegeben.
Aussage 6
Verdoppelt man die Enzymmenge im Ansatz, verdoppelt sich auch der \(K_M\)-Wert.
Mehr Enzym verdoppelt nur \(v_{max}\). \(K_M\) ist unabhängig von der Enzymmenge.
Aussage 7
\(K_M\) ist die Substratkonzentration, bei der ein Enzym seine Maximalgeschwindigkeit erreicht.
\(K_M\) gehört zur halbmaximalen Geschwindigkeit \(v_{max}/2\). \(v_{max}\) selbst wird nur asymptotisch erreicht.
Fehler entdeckt oder eine Idee? Wir verbessern die Inhalte laufend. Melde es uns gerne über dieses Formular ❤️
Teile der Inhalte wurden mithilfe von KI-Systemen erstellt und werden fortlaufend redaktionell geprüft. Trotz Sorgfalt können Fehler enthalten sein. Wichtige Informationen bitte anhand offizieller Quellen prüfen. Relaxed ins Stex ist ein unabhängiges Angebot und steht in keiner Kooperation mit dem IMPP. Das Angebot ist weder vom IMPP autorisiert noch mit diesem verbunden.